Acquariofilia dolce
Acquariofilia marina
Piante d'acquario
Scienza applicata all'acquario
alofita facoltativa, avicennia germinans, esportazione di nutrienti, mangrovia in acqua dolce, mangrovia in acqua salmastra, mangrovia in acquario, mangrovia in acquario marino, mangrovia nel refugium, mangrovia rossa, paludario con mangrovia, passaporto delle piante, propagulo di mangrovia, radici a trampolo, rhizophora mangle
Francesco Avezzano
0 Commenti
Mangrovia in acquario, tra ecofisiologia e miti da negozio
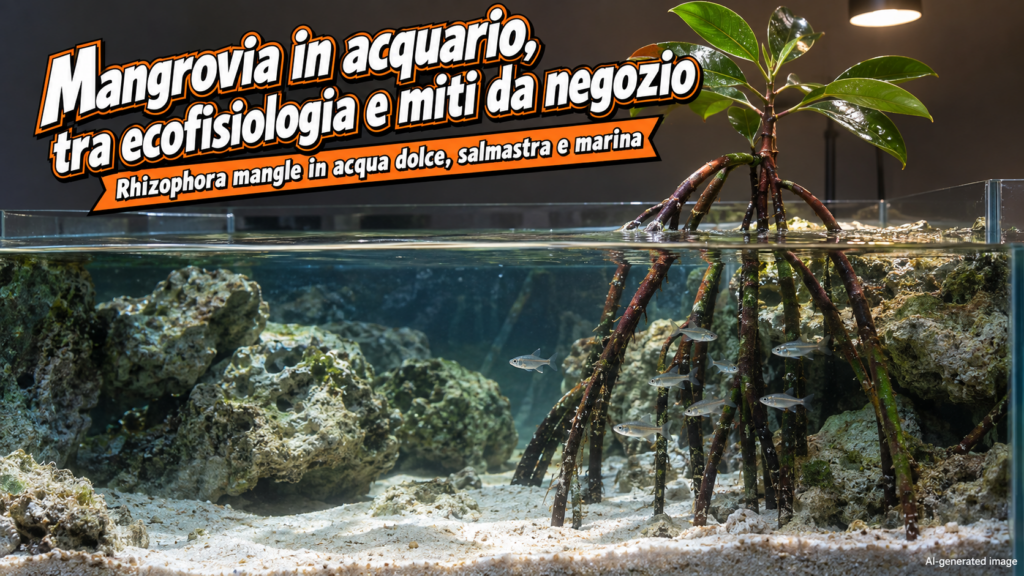
La chiamano mangrovia, al singolare, come se fosse una pianta sola. Nei negozi europei arriva quasi sempre la mangrovia rossa, un albero della fascia di marea che in natura raggiunge di norma i 10-20 metri e che in vasca parte da un sigaro verde lungo una spanna. Alcune schede prodotto la promettono adatta all’acqua dolce, a quella salmastra e al mare, mentre il passaparola degli acquariofili le attribuisce la capacità di ripulire l’acqua da nitrati e fosfati. Per capire che cosa aspettarsi da una mangrovia in acquario ho messo queste promesse a confronto con gli esperimenti di fisiologia vegetale, con i mesocosmi che hanno ospitato mangrovie per anni e con le regole europee sulle piante vive. Ne esce promosso il salmastro, il marino passa con qualche riserva, mentre per l’acqua dolce non ho trovato una sola prova sperimentale a favore della coltivazione di lungo periodo.
Nome comune e sinonimi tassonomici
In italiano il nome corretto è mangrovia rossa, dall’inglese red mangrove. Il colore del nome indica il legno rosso vivo sotto la corteccia e la tinta rossastra delle radici aeree, come spiega la scheda di Medina Irizarry e Andreu per l’Università della Florida. La stessa scheda ricorda l’etimologia del genere. Rhizophora unisce il greco rhiza (radice) e phoros (che porta), un riferimento alle radici a trampolo che sollevano il tronco sopra il fango.
Il nome scientifico accettato è Rhizophora mangle L., descritto da Linneo nel 1753, famiglia Rhizophoraceae, ordine Malpighiales, secondo Plants of the World Online dei Royal Botanic Gardens di Kew. Kew elenca tra i sinonimi Rhizophora americana Nutt. e Bruguiera decangulata Griff. Le abbreviazioni dopo i nomi indicano gli autori della descrizione, Linneo, Thomas Nuttall e William Griffith.
Nelle Americhe il genere comprende anche Rhizophora racemosa e la forma nota come Rhizophora × harrisonii. Le analisi genetiche di Cerón-Souza e colleghi 2010 la descrivono come un morfotipo, cioè una forma riconoscibile dall’aspetto, prodotta da incroci e reincroci continui tra R. mangle e R. racemosa, senza le prove genetiche di una specie ibrida autonoma. Per l’acquariofilo il dettaglio pesa poco, perché nei negozi europei che ho controllato si trova R. mangle. Pesa di più sapere che la parola mangrovia indica un gruppo ecologico.
Descrizione generale
Le mangrovie sono alberi e arbusti della zona intertidale tropicale e subtropicale, la fascia costiera sommersa dall’alta marea ed esposta con la bassa. Il gruppo mette insieme specie di famiglie diverse che condividono lo stesso ambiente, tra 55 e 70 a seconda dei criteri adottati (Kanai e Sakai 2021; Polidoro e colleghi 2010). Nella valutazione globale del rischio di estinzione coordinata da Polidoro, 11 specie su 70 rientrano nelle categorie di minaccia. Lungo le coste atlantiche e pacifiche dell’America centrale la quota di specie minacciate sale al 40%.
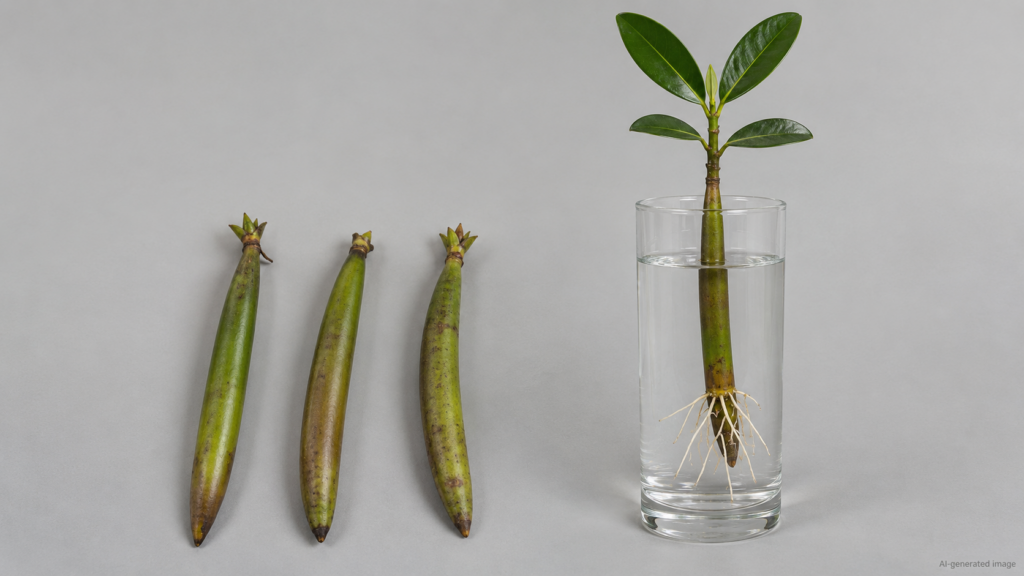
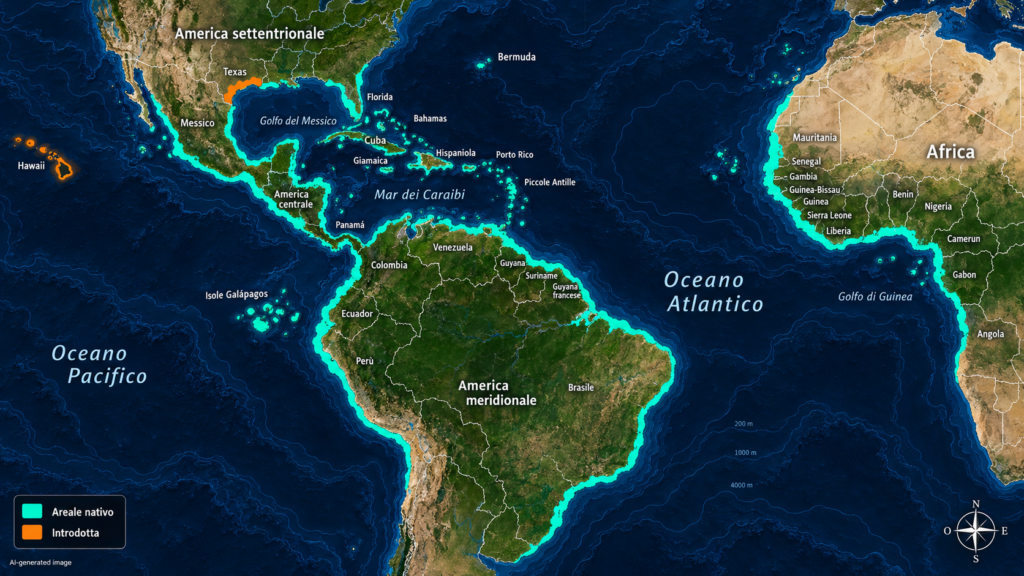
R. mangle cresce sulle coste atlantiche delle Americhe, sul versante pacifico tra Messico e Perù e in Africa occidentale. La sua caratteristica più importante per chi la compra si chiama viviparità. Il seme germina mentre il frutto è ancora attaccato alla pianta madre. L’embrione allunga poi l’ipocotile, il fusto embrionale sotto le prime foglie, fino a formare il propagulo, la plantula a forma di sigaro che cade in acqua e che il commercio vende.
Nei mesi passati sull’albero l’ipocotile accumula riserve. Lin e Sternberg 1995 hanno visto crescere area fogliare e biomassa delle plantule con la massa iniziale del propagulo, mentre la crescita relativa, cioè l’aumento di massa per unità di massa già presente, restava la stessa. Gli autori attribuiscono le differenze alle riserve materne dell’ipocotile. In serra Richards e colleghi 2021 hanno coltivato propaguli per 6,5 mesi a 15 e a 45 parti per mille (‰) di salinità, cioè grammi di sali per chilogrammo d’acqua, senza trovare differenze di altezza e di biomassa totale. Anche loro spiegano il risultato con la dipendenza dalle riserve materne. In vasca lo stesso serbatoio può nascondere per mesi gli effetti di condizioni sbagliate.
Morfologia
Le foglie di R. mangle sono opposte, spesse, coriacee e lucide, di forma da ellittica a oblunga. La scheda dell’Università della Florida le misura tra circa 4 e 15 cm di lunghezza e tra 1,3 e 5 cm di larghezza. I fiori sono piccoli, giallo pallido, poi bruni. Ai tropici compaiono in ogni stagione.
Il propagulo misura tra 8 e 30 cm e pesa tra 3 e 35 g secondo il manuale sui semi degli alberi tropicali del Servizio forestale del Dipartimento dell’Agricoltura degli Stati Uniti, d’ora in poi USDA. La scheda della Florida arriva a 38 cm di lunghezza. Lin e Sternberg hanno pesato propaguli freschi tra 3,9 e 20,7 g negli alberi a portamento nano e tra 5,3 e 35,8 g in quelli alti, quindi la taglia dipende anche dalla pianta madre. Le radici spuntano dall’estremità inferiore, quella appuntita. All’estremità opposta si trova la gemma da cui nascono fusto e foglie.
Le strutture che hanno reso famosa la specie sono le radici a trampolo. La scheda della Florida le chiama anche radici aeree o, con il termine formale, rizofori. Partono dal fusto e dai rami, scendono ad arco nel sedimento e sollevano il tronco sopra il fango. Negli organi sommersi delle mangrovie l’aria passa attraverso l’aerenchima, un tessuto ricco di spazi gassosi. Parte dell’ossigeno esce nel sedimento con un processo chiamato perdita radiale di ossigeno, che Pi e colleghi 2009 hanno misurato in 8 specie di mangrovie.
Il sale segue una strada precisa. R. mangle appartiene alle specie esclusore, che fermano la maggior parte dei sali alle radici. Nelle mangrovie questa barriera tiene fuori dallo xilema, i vasi che portano l’acqua alle foglie, fino al 99% dei sali della soluzione del suolo, secondo la rassegna di Reef e Lovelock 2015. Werner e Stelzer 1990 descrivono per R. mangle 3 filtri in successione, la filtrazione radiale attraverso la corteccia della radice, lo scambio di ioni nelle cellule che circondano lo xilema e l’accumulo di sodio e cloruro nell’ipoderma acquifero delle foglie, uno strato di cellule sotto l’epidermide che fa da serbatoio d’acqua. Nello stesso studio le foglie mostravano oscillazioni giornaliere di acido malico senza assorbire anidride carbonica di notte. Gli autori parlano di CAM-cycling, una forma attenuata del metabolismo acido delle crassulacee in cui la pianta ricicla di notte l’anidride carbonica della propria respirazione.
Alla mangrovia rossa mancano le ghiandole saline, le strutture con cui Avicennia e Laguncularia espellono sale dalla superficie fogliare (Sobrado 2004; Reef e Lovelock 2015). La conseguenza pratica ridimensiona un’idea che circola anche in testi divulgativi italiani, quella di una mangrovia rossa che espelle il sale dalle foglie. I cristalli bianchi sulle foglie di una mangrovia rossa in vasca vengono con ogni probabilità da schizzi d’acqua salata evaporati. È una mia deduzione fisica, perché non ho trovato misure dirette in letteratura.
Modalità di vita
La mangrovia rossa vive dove terra e mare si alternano con le maree. Le radici stanno in sedimenti poveri di ossigeno, la salinità cambia con maree, piogge e piene dei fiumi, le foglie restano all’aria. Lugo e Snedaker 1974 hanno classificato le foreste di mangrovie in 6 tipi secondo idrologia e posizione, dalle frange esposte al mare alle foreste lungo i fiumi, dai bacini interni alle formazioni nane.
Oltre al sale contano luce, fosforo e ossigeno del suolo. Koch 1997 ha seguito in Florida plantule alte tra 25 e 85 cm. Nelle radure della foresta crescevano da 2 a 5 volte più in fretta che sotto la chioma chiusa. Tra le radure la crescita mostrava una correlazione di 0,98 con il fosforo labile del suolo (la frazione subito disponibile per le radici) e di 0,89 con il potenziale redox (la misura di quanto il suolo sia ossidato o ridotto). La salinità interstiziale, quella dell’acqua nei pori del suolo, andava da 0 a 27 parti per mille. Koch indica l’anossia del suolo, cioè la mancanza di ossigeno, come probabile fattore di stress nelle lagune con poco ricambio di marea.
Alofita obbligata o facoltativa
Per chi vuole la mangrovia in acqua dolce questa è la domanda decisiva. Un’alofita è una pianta adattata a suoli o acque salate. L’aggettivo obbligata indica una pianta che senza sale deperisce, facoltativa una pianta che il sale lo tollera senza averne bisogno. Sulle mangrovie gli autori non concordano. La rassegna di Wang e colleghi 2011 le colloca tra le alofite obbligate. Krauss e Ball 2013 hanno risposto difendendo la natura facoltativa, pur riconoscendo che la crescita migliore arriva a salinità moderate.
Il dato sperimentale più diretto su R. mangle viene da Werner e Stelzer. Le loro piante, dopo 9 mesi di precoltura in serra, sono passate in una soluzione nutritiva non aerata senza sale oppure con 200 millimoli per litro di cloruro di sodio, circa 11,7 g/L, un terzo della salinità marina. Le piante con sale sono cresciute di più, con più clorofilla e più assimilazione di anidride carbonica. Quelle senza sale sono morte progressivamente dopo la fine delle prove, durate circa 200 giorni. Lo studio ha un limite serio. Anche le piante con sale stavano in una soluzione non aerata, quindi la carenza di ossigeno da sola non spiega la morte dei controlli. Resta possibile un effetto combinato di mancanza di sale e ipossia. In una vasca ossigenata l’esito potrebbe cambiare, ma nessun lavoro che ho trovato lo ha verificato.
Kanai e Sakai 2021 riportano una sopravvivenza molto bassa senza cloruro di sodio anche nelle plantule di Rhizophora mucronata, specie indo-pacifica dello stesso genere, che definiscono alofita obbligata. Lo stesso lavoro mostra che le radici assorbono gli ioni nutritivi anche in assenza di sodio. Per Avicennia germinans Suárez e Medina 2005 hanno trovato la crescita massima a 170 millimoli per litro di cloruro di sodio, circa 9,9 g/L.
Una seconda serie di esperimenti scende verso l’acqua quasi dolce. Krauss e Allen 2003 hanno coltivato in serra plantule di R. mangle a 2, 10 e 32 PSU, le unità pratiche di salinità ricavate dalla conducibilità elettrica, numericamente quasi uguali alle parti per mille. La fotosintesi massima andava da 8,3 micromoli di anidride carbonica per metro quadrato al secondo a 2 PSU fino a 10,5 a 32 PSU, con 9,3 a 10 PSU. Secondo gli autori la fotosintesi della mangrovia rossa rispondeva soltanto alla luce.
L’esperimento messicano di Febles-Patrón e colleghi 2007 chiama «acqua dolce» un’acqua di sorgente che misurava 5-7 PSU, quindi salmastra. Gli autori hanno tenuto 180 propaguli per 48 giorni con l’ipocotile immerso in acqua, infilati in una lastra di polistirolo, a 3 salinità, 5-7, 30-40 e 70-75 PSU, all’ombra oppure al sole diretto. All’ombra sono sopravvissuti tutti. Al sole la sopravvivenza è scesa al 53,33% a bassa salinità, al 40% in acqua di mare e allo 0% in quella ipersalina, con l’acqua che toccava 35,9-36,6 °C. La produzione di radici calava con l’aumento della salinità, anche se le radici singolarmente più lunghe si sono formate in acqua di mare all’ombra, con 5,49 cm. Il guadagno di peso ha raggiunto il 16,73% con ombra e bassa salinità contro il 2,94% con ombra e acqua di mare. Solo nel primo trattamento sono spuntate foglie. Gli stessi autori riportano un lavoro di Pannier del 1959 con il massimo di foglie e di radici a 9 PSU.
Sul fronte opposto stanno 2 affermazioni prive di esperimento. La scheda del Global Invasive Species Database, la banca dati mondiale delle specie invasive gestita dalla IUCN, l’Unione internazionale per la conservazione della natura, riporta una tolleranza da 0 a 90 parti per mille e definisce il sale non necessario allo sviluppo. Come fonte cita una pagina divulgativa della Smithsonian Marine Station del 2001. L’intervallo riassume le salinità dei luoghi in cui la specie vive in natura e dice poco su quelle in cui cresce bene per anni. Wu e colleghi 2008 scrivono che le mangrovie crescono bene in acqua dolce senza marea e rimandano a un lavoro del 2004 che non sono riuscito a consultare.
Dai lavori citati R. mangle esce come una specie che cresce al meglio tra 5 e 15 PSU, che a 32-35 PSU lavora ancora bene e che in campo vive anche in suoli con acqua quasi dolce, almeno al momento della misura. L’unica coltura di lungo periodo senza sale che ho trovato pubblicata si è chiusa con la morte delle piante. Nessun esperimento pubblicato che conosco ha tenuto R. mangle per anni in acqua dolce ossigenata. Per questo considero la mangrovia in acqua dolce una scommessa. La formula letta su un rivenditore europeo, «perfetto per acquari e paludari di acqua dolce, acqua salmastra e acqua di mare», non ha basi pubblicate per la parte dolce.
Dimensioni massime
Il manuale dello USDA indica per la specie un’altezza di 10-20 m, con esemplari oltre i 40 m nei siti migliori e accrescimenti di 1-1,5 m l’anno nei suoli più produttivi. In Florida l’albero arriva a circa 18 m secondo la scheda dell’Università della Florida. All’estremo opposto esistono popolamenti nani. Koch li descrive sotto 1 m di altezza nelle Everglades sudorientali. In Belize Feller e colleghi 2003 hanno trovato la crescita della fascia nana limitata dal fosforo, quella della frangia esterna dall’azoto. Medina e colleghi 2010 arrivano alla stessa conclusione sul fosforo per le mangrovie nane su torba di Porto Rico, prive di un fusto principale.
Nei popolamenti studiati la statura segue quindi la disponibilità di nutrienti, in particolare di fosforo. In vasca l’altezza la decide la forbice, perché non ho trovato studi che misurino quanto possa crescere una mangrovia confinata in acquario.
Stato IUCN e conservazione
La IUCN valuta il rischio di estinzione delle specie in tutto il mondo e pubblica i risultati nella Lista Rossa. Per R. mangle la scheda della Lista Rossa indica Least Concern (LC), cioè «minor preoccupazione», la categoria di rischio più bassa della scala, riservata alle specie con popolazioni stabili e senza segnali di declino preoccupante. L’anno della valutazione non è univoco. La scheda, firmata da Ellison, Farnsworth e Moore, ha un DOI, l’identificativo digitale permanente dei documenti scientifici, che riporta il 2007 nei metadati e la versione 2015-1 della Lista nel codice, mentre Kew cita una valutazione del 2010. Anche A. germinans e Laguncularia racemosa risultano LC.
Lo stato della specie è buono, quello del suo ambiente meno. Polidoro e colleghi hanno calcolato che lungo le coste dell’America centrale il 40% delle specie di mangrovie è minacciato. Le foreste di mangrovie fanno da vivaio naturale per molti pesci di barriera. Mumby e colleghi 2004 hanno mostrato che nei Caraibi la biomassa di diverse specie di interesse commerciale più che raddoppia quando l’habitat degli adulti è collegato alle mangrovie. Il pesce pappagallo arcobaleno, Scarus guacamaia, il più grande erbivoro dell’Atlantico, dipende dalle mangrovie ed è scomparso localmente dove l’uomo le ha tagliate.
Habitat, origine e distribuzione geografica
Secondo Kew l’areale nativo di R. mangle comprende le Bermuda, le Bahamas, la Florida, le coste messicane del Golfo del Messico e del Pacifico, l’America centrale su entrambi i versanti, le Antille, le coste atlantiche del Sud America dal Venezuela al Brasile meridionale, il Pacifico tra Colombia e Perù con le Galápagos. Oltre l’Atlantico la specie vive in Africa occidentale, dalla Mauritania all’Angola, isole del Golfo di Guinea comprese. In Florida il limite settentrionale coincide con la contea di Levy sul lato del Golfo e con quella di St. Johns sul lato atlantico, perché l’albero non sopporta il gelo.
Kew registra 2 introduzioni, le Hawaii e il Texas. Alle Hawaii la mangrovia rossa è arrivata nel 1902 per stabilizzare le coste (Allen 1998; Krauss e Allen 2003). Oggi cresce su quasi tutte le isole maggiori, dove forma popolamenti quasi puri. Il Global Invasive Species Database la considera capace di soppiantare le specie native e riporta un dettaglio utile anche in vasca, tratto da un documento tecnico senza data. Le piante tagliate a 10 cm dal suolo, oppure a filo d’acqua se giovani e sommerse, difficilmente ricacciano.
Temperatura in natura
Il manuale dello USDA colloca l’areale tra medie annue di 21 e 30 °C. Il freddo fissa il confine settentrionale in Florida. Nell’esperimento di Febles-Patrón l’acqua esposta al sole arrivava a 35,9-36,6 °C e la mortalità cresceva con la salinità, mentre all’ombra sopravvivevano tutti i propaguli. Il disegno sperimentale non separa però l’effetto del calore da quello della luce. In serra Richards e colleghi hanno mantenuto i loro propaguli tra 18 e 29 °C.
In vasca una temperatura di 24-28 °C cade dentro l’intervallo delle medie dell’areale e va bene per la pianta come per la fauna tropicale che la accompagna. Per l’acquario non ho trovato misure dirette. Il rischio termico più concreto, per analogia con il dato messicano, riguarda le foglie emerse sotto una lampada troppo vicina.
Parametri ambientali, natura e acquario a confronto
Nella tabella il PAR, la radiazione fotosinteticamente attiva, indica la luce tra 400 e 700 nanometri che le piante usano per la fotosintesi. Si misura in micromoli di fotoni per metro quadrato al secondo (µmol m⁻² s⁻¹) con un quantometro. L’ultima colonna dichiara quanto sia solido ciascun dato.
| Parametro | In natura | In acquario | Solidità del dato |
|---|---|---|---|
| Temperatura | medie annue 21-30 °C, sensibile al gelo | 24-28 °C | buona in natura, per la vasca è una mia indicazione |
| Salinità | da 0 a 90 ‰ nei luoghi in cui vive, crescita penalizzata oltre 35 PSU | 5-15 PSU come optimum, fino a 35 PSU con crescita più lenta | buona per salmastro e marino, dibattuta per l’acqua dolce |
| Acqua dolce | suoli con acqua quasi dolce in alcuni siti, da misure puntuali | sconsigliata per il lungo periodo | nessuna coltura pluriennale pubblicata |
| pH | 5,3-8,5 | quello richiesto da pesci e coralli | modesta, dato di una scheda divulgativa |
| Luce | saturazione fogliare attorno a 610 µmol m⁻² s⁻¹ nelle plantule | fino a circa 600 µmol m⁻² s⁻¹ alle foglie | discreta, un solo studio sulle plantule |
| Azoto e fosforo | spesso limitanti, ammonio come forma principale di azoto | nessuna concimazione nel marino | buona in natura, assente per la vasca |
| Acqua sopra la base | sommersione periodica con la marea | 10-15 cm al massimo | discreta, ricavata da dati di vivaio e da esperimenti |
| Durezza (GH e KH) | nessun dato | nessun dato | assente |
Coltivazione della mangrovia in acquario
In ogni ambiente la pianta chiede le stesse 4 cose, la base del propagulo a contatto con il substrato, poca acqua sopra il punto d’impianto, la chioma all’aria e una vasca aperta sopra. Cambiano la salinità e le aspettative.
Scelta del propagulo
Conviene partire da un propagulo di mangrovia lungo e pesante. Lin e Sternberg hanno legato area fogliare e biomassa delle plantule alla massa iniziale del propagulo. Richards e colleghi hanno trovato l’altezza raggiunta correlata alla lunghezza del propagulo al momento della raccolta.
Il manuale dello USDA riporta una germinazione superiore al 90% e una conservazione di 3-4 settimane, fino a 2 mesi tra fogli di carta umida. Cita anche un lavoro del 1940 secondo cui il propagulo galleggia e resta vitale in acqua fino a 1 anno. Nei vivai tropicali lo USDA descrive una pre-immersione di 2 settimane prima della semina e annaffiature con acqua salmastra a 15 parti per mille, che riducono lo shock da trapianto e i patogeni. Quest’ultimo dettaglio, preso da una pratica forestale, pesa anche nel dibattito sull’acqua dolce.
Tra i parassiti lo USDA elenca un coleottero scolitide, Coccotrypes rhizophorae, che scava nei propaguli e nelle plantule. Nei Caraibi Sousa e colleghi 2003 hanno misurato una mortalità da attacco del coleottero del 10% dentro le radure, fino al 72% a 20 m dentro la foresta. Per prudenza scarterei un propagulo con piccoli fori, anche se non conosco studi che abbiano valutato questo criterio di scelta.
Un propagulo senza foglie dopo 2 mesi può essere ancora vivo. Su 1149 propaguli seguiti da Richards e colleghi per 6,5 mesi, 907 sono cresciuti, 166 sono rimasti dormienti e 76 sono morti. La consistenza aiuta a decidere. Un propagulo sodo può restare fermo a lungo, uno molle e annerito è di solito marcio, secondo l’esperienza comune degli hobbisti.
Messa a dimora e substrato
Il propagulo si raddrizza da solo. Cheeseman 2012 ha filmato in camera di crescita il raddrizzamento dei propaguli di R. mangle coricati. Il processo procede in 4 fasi con cicli di 24 ore. Prima il propagulo si solleva e si rilassa ogni giorno, poi si curva verso l’alto a circa 2/3 della distanza tra base e apice, quindi una seconda curvatura alla base lo solleva tutto, infine l’apice si gonfia e le foglie si aprono. Con la base a contatto con il substrato l’orientamento iniziale non cambiava i tempi di apertura delle foglie. Senza contatto con il fondo i ritardi si accumulavano in ogni fase. All’inizio si allungavano anche con la salinità.
In campo la fase più pericolosa è proprio l’insediamento. In Belize McKee 1995 ha trovato la mortalità più alta in questa fase, per propaguli che perdevano vitalità prima di arenarsi, per predatori e per disseccamento. Dopo l’insediamento l’orientamento iniziale dell’asse influiva ancora sulla sopravvivenza di R. mangle.
Sulla profondità lo USDA riporta un impianto per 1/4-1/3 della lunghezza, con una crescita migliore quando il propagulo entra nel suolo per soli 2,5-4 cm. La semina diretta fallisce dove l’acqua supera i 20 cm. Ellison e Farnsworth 1997 hanno simulato per 2,5 anni un livello del mare più alto di 16 cm e hanno visto rallentare la crescita nel secondo anno. Balke e colleghi 2011 hanno descritto per Avicennia alba 3 soglie da superare in sequenza. Prima serve un periodo senza sommersione per sviluppare radici abbastanza lunghe. Poi le radici devono resistere allo spostamento causato da onde e correnti. Infine devono reggere l’erosione del sedimento durante gli eventi più energici.
In vasca questi dati portano a un propagulo infilato per pochi centimetri in sabbia grossolana o ghiaietto, su un fondo o un ripiano coperto al massimo da 10-15 cm d’acqua, bloccato con una pietra o una clip finché le radici non lo reggono. Koch ha trovato la crescita correlata al potenziale redox del suolo. Da qui la mia preferenza per substrati grossolani attraversati dall’acqua rispetto a strati fini, profondi e stagnanti, una deduzione che non ho visto verificata in acquario. Esiste anche la via senza substrato. Nell’esperimento di Febles-Patrón i propaguli, infilati in una lastra di polistirolo con l’ipocotile in acqua, hanno emesso radici in 48 giorni.
Acqua dolce e paludario
Chi vuole comunque tentare la mangrovia in acqua dolce deve sapere su cosa scommette. Nei primi mesi la pianta dà poche indicazioni, perché vive delle riserve dell’ipocotile. Werner e Stelzer hanno visto morire le piante senza sale dopo 9 mesi di precoltura e circa 200 giorni di prova. Un giudizio serio richiede quindi 12-18 mesi di osservazione, un tempo che ricavo da quello studio e che nessun lavoro che conosco ha fissato. Non ho trovato studi sull’effetto di durezza, pH o fertilizzanti per piante d’acquario su R. mangle coltivata in acqua dolce.
Un paludario con mangrovia offre aria umida e spazio in altezza. Se l’acqua del paludario è dolce valgono le riserve appena descritte. Un paludario salmastro a 5-15 PSU mette invece la pianta nelle condizioni migliori documentate, a patto di scegliere animali che tollerino quella salinità. Per passare da acqua dolce a salmastra esiste un modello pubblicato. Richards e colleghi hanno alzato la salinità a gradini di 5 parti per mille, arrivando a 15 in 2 settimane e a 45 in 6 settimane.
Acqua salmastra
La mangrovia in acqua salmastra trova il suo ambiente migliore. Tra 5 e 15 PSU cadono il massimo di foglie e radici a 9 PSU riportato da Pannier, il miglior guadagno di peso a 5-7 PSU di Febles-Patrón e la crescita superiore con 11,7 g/L di cloruro di sodio di Werner e Stelzer. Per arrivarci basta sciogliere sale marino sintetico in acqua d’osmosi, tra il 30 e il 40% della dose usata per l’acqua di mare. Per la misura serve un rifrattometro dotato di scala in parti per mille. In una vasca aperta l’acqua evapora e i sali restano, quindi i rabbocchi vanno fatti con acqua d’osmosi.
Il riferimento più solido per un sistema chiuso viene dal mesocosmo delle Everglades di Adey e colleghi 1996. Un mesocosmo è un ecosistema ricostruito in scala, abbastanza grande da comportarsi come quello naturale. Il mesocosmo di Adey, costruito tra il 1987 e il 1988 in una serra di Washington, riproduceva un transetto di 50 km delle Everglades sudoccidentali, dalla riva del Golfo del Messico all’acqua dolce, con circa 98,5 m³ d’acqua e una marea di 13-26 cm ogni mezza giornata. Nell’estuario inferiore dominavano R. mangle e A. germinans. Partite in gran parte da giovani alberi e da poche plantule, al censimento del 1994-1995 le mangrovie avevano formato una chioma matura e si erano riprodotte per seme.
Acquario marino, refugium e vasca di barriera
In acqua di mare la specie resta vicina al limite alto del proprio intervallo favorevole. Lo USDA indica una crescita penalizzata oltre circa 35 PSU e una mortalità possibile sopra 60. Una rassegna di Jiménez del 1994, riportata da Febles-Patrón e colleghi, fissa il limite di R. mangle attorno a 65 PSU contro i 100 di A. germinans. A 32 PSU la fotosintesi delle plantule di Krauss e Allen non risultava inferiore a quella misurata a salinità più basse. A 30-40 PSU i propaguli di Febles-Patrón sopravvivevano all’ombra ma guadagnavano peso molto meno che a 5-7 PSU.
La prova più convincente arriva da Biosphere 2, in Arizona. Finn, Kangas e Adey 1999 raccontano che mangrovie della Florida sudoccidentale, piantate da piccole, hanno formato popolamenti densi con un indice di area fogliare tra 2,16 e 4,02, cioè tra 2 e 4 m² di foglie per ogni m² di suolo. La salinità restava tra 20 e 32 parti per mille, un poco sotto i 35 di una vasca di barriera, senza marea e con poche oscillazioni. Le 3 specie principali, R. mangle, A. germinans e L. racemosa, hanno fiorito, prodotto semi e generato plantule. Il prototipo di Washington aveva 48 m² di mangrovie, Biosphere 2 circa 10 volte tanto.
La mangrovia in acquario marino funziona quindi, con una crescita attesa più lenta rispetto al salmastro. Chi tiene la vasca di barriera a 33-34 PSU la avvicina un poco all’optimum, ma la salinità di una vasca di coralli la decidono i coralli.
Il refugium è una vasca collegata al circuito principale in cui si coltivano alghe e microfauna al riparo dai pesci. La mangrovia nel refugium tiene le radici in acqua e la chioma sopra il vetro, con una lampada dedicata. Ha senso come elemento di biotopo e come riparo per la microfauna tra le radici. Il suo contributo all’esportazione dei fosfati resta trascurabile per ragioni di pura aritmetica, legate alla composizione delle foglie. Nella vasca espositiva servono invece un’apertura sopra l’acqua, spazio in altezza e una posizione in cui l’ombra della chioma non tolga luce ai coralli più esigenti.
Crescita e potatura
Convertiti in centimetri l’anno, i valori di Koch danno 12-69 cm nelle radure e 5-15 cm sotto la chioma chiusa. In vivaio all’aperto, nell’areale d’origine, lo USDA riporta 30-60 cm nel primo anno. I venditori dichiarano per l’acquario 5-15 cm l’anno. Non ho trovato misure in vasca che lo confermino, ma il valore coincide con quello delle plantule all’ombra della foresta.
Sulla potatura ho trovato pochissimo. La pratica hobbistica taglia l’apice per ottenere una chioma più ramificata, senza studi sulla risposta della specie. Il solo dato che ho trovato viene dall’eradicazione alle Hawaii, dove le piante tagliate basse difficilmente ricacciano. Il fusto principale non va quindi mai tagliato vicino alla base. Non ho trovato nemmeno dati su quanto tempo impieghi una plantula in coltura a formare i primi rizofori.
Dimensioni minime dell’acquario
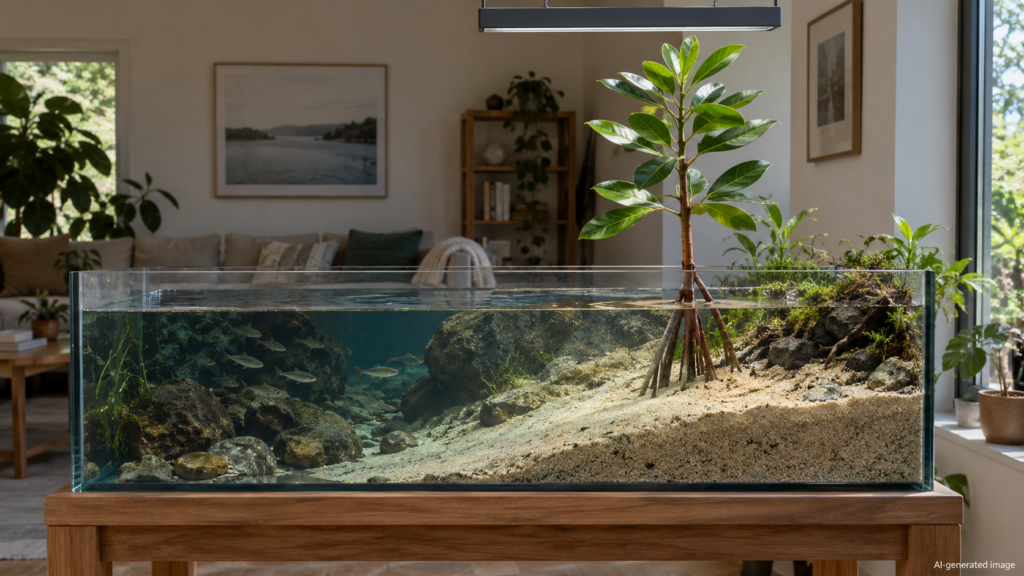
Per la mangrovia in acquario non ho trovato studi che indichino un volume minimo. I vincoli reali stanno in altezza. Un propagulo misura 8-38 cm e una plantula, anche con la crescita lenta dell’ombra, guadagna 5-15 cm l’anno. La base deve restare sotto poca acqua, mentre la chioma ha bisogno di aria libera e di una lampada sollevabile.
La mia indicazione, ricavata da questi dati e non da prove sperimentali, è una vasca aperta di almeno 60 cm di lunghezza, con un punto d’impianto coperto da 5-15 cm d’acqua e almeno 50-60 cm di spazio libero sopra il pelo dell’acqua per i primi anni. Una vasca più profonda funziona se la pianta sta su un ripiano di roccia vicino alla superficie. Nel refugium valgono le stesse regole, con un problema pratico in più, perché spesso sta dentro il mobile sotto la vasca, dove lo spazio in altezza manca.
Illuminazione in acquario
Krauss e Allen hanno misurato nelle foglie delle plantule un punto di saturazione, l’intensità oltre la quale la fotosintesi smette di aumentare, di circa 610 µmol m⁻² s⁻¹, con un errore standard superiore a 200. Il dato indica quindi un ordine di grandezza. Koch ha visto crescere le plantule da 2 a 5 volte più in fretta nelle radure che sotto la chioma. Nelle radure caraibiche studiate da Sousa e colleghi il coleottero perforatore uccideva molte meno plantule.
La specie modifica le foglie secondo la luce. Augusto da Silva e colleghi 2016 hanno confrontato foglie di sole e d’ombra sugli stessi alberi. Le foglie di sole avevano cuticola ed epidermide più spesse, un parenchima a palizzata (il tessuto fotosintetico sotto l’epidermide superiore) più sviluppato e 70 stomi per mm² contro 47. Gli stomi sono i pori da cui la foglia scambia gas e vapore acqueo.
Con una mangrovia in acquario conviene misurare il PAR all’altezza delle foglie con un quantometro. Oltre circa 600 µmol m⁻² s⁻¹ la plantula non guadagna fotosintesi. Con meno luce la crescita rallenta, come mostrano i dati di Koch, ma non ho trovato un valore minimo di sopravvivenza. Per il fotoperiodo propongo 10-12 ore, vicino alla durata del giorno ai tropici. Sullo spettro delle lampade da barriera, ricche di blu, non ho trovato dati per R. mangle. Per analogia con l’esperimento messicano conviene tenere le lampade abbastanza lontane da non scaldare apice e foglie.
Corrente in acquario
La corrente conta soprattutto finché il propagulo non ha radici. Balke e colleghi mostrano che una plantula resiste a onde e correnti solo quando le radici hanno raggiunto una lunghezza sufficiente. Un getto forte sulla base di un propagulo appena piantato può coricarlo o spostarlo. Senza contatto con il substrato il raddrizzamento rallenta, come ha osservato Cheeseman.
Una volta radicata la pianta regge bene. Un movimento moderato attorno alle radici aiuta a evitare zone d’acqua ferma, coerente con l’indicazione di Koch sull’anossia dove manca il ricambio. Una superficie molto agitata sotto la chioma produce invece schizzi di acqua salata che evaporano e lasciano sale sulle foglie.
Fertilizzazione e nutrienti
In natura azoto e fosforo limitano la crescita delle mangrovie. La rassegna di Reef, Feller e Lovelock 2010 indica l’ammonio come forma principale di azoto nei suoli di mangrovia e colloca questi alberi tra le angiosperme con la più alta efficienza d’uso e di riassorbimento dei nutrienti. In pratica le foglie recuperano buona parte di azoto e fosforo prima di cadere. In Belize Feller e colleghi hanno trovato la frangia esterna limitata dall’azoto e la fascia nana dal fosforo. Koch ha misurato la correlazione più forte proprio con il fosforo labile.
L’azoto cambia anche la risposta al sale. Richards e colleghi hanno aggiunto circa 3 mg di azoto per vaso alla settimana, pari a 75 kg per ettaro all’anno. A livelli naturali di azoto la fotosintesi massima calava con la salinità. Con l’azoto aggiunto l’effetto negativo del sale spariva o si invertiva.
Per l’acquario non ho trovato prove. Nel marino la pianta trova i nutrienti che arrivano dal cibo dei pesci e non serve concimarla. Nel dolce e nel salmastro chi usa pastiglie di fertilizzante vicino alla base lo fa per analogia con le piante palustri, senza studi su R. mangle. Anche l’ingiallimento fogliare attribuito alla carenza di ferro appartiene al passaparola degli hobbisti.
Esportazione di nitrati e fosfati
Nel mondo dell’acquario circola l’idea della mangrovia come filtro vivente contro nitrati e fosfati. Tra gli studi sottoposti a revisione tra pari che ho trovato, nessuno ha misurato quanto azoto o fosforo sottragga una mangrovia in un acquario domestico. Le misure esistenti riguardano le zone umide costruite. Nei microcosmi piantati con Kandelia candel da Wu e colleghi sono spariti oltre il 97% dell’ortofosfato (il fosfato disciolto misurato dai test) e il 75-79% dell’azoto Kjeldahl totale (la somma di azoto organico e ammoniacale). Il sistema trattava acque reflue urbane trattenute 5-10 giorni, per 6 mesi. Il risultato riguarda però un sistema intero di suolo, microbi e piante.
Per il fosforo ho fatto un conto d’ordine di grandezza. Medina e colleghi collegano i valori isotopici delle foglie adulte di R. mangle a concentrazioni di fosforo sotto 13 millimoli per chilogrammo di peso secco nei popolamenti più poveri e sopra 30 in quelli più ricchi. Con 31 g di fosforo per mole, 13 millimoli corrispondono a 0,40 g di fosforo per chilogrammo di foglie secche, 30 millimoli a 0,93 g.
Per il mangime prendo l’1% di fosforo totale, l’ordine di grandezza dei mangimi per trote citati da Sugiura 2025, passati dall’1,1 allo 0,9% con le riformulazioni. Secondo la stessa rassegna i pesci trattengono il 40-60% del fosforo del mangime. Ogni chilogrammo di mangime porta quindi in vasca circa 10 g di fosforo, di cui 4-6 g escono dai pesci con feci e urina. Per immobilizzarli nelle foglie una mangrovia dovrebbe costruire tra 4 e 15 kg di foglie secche. Il conto è generoso con la pianta, perché usa la concentrazione delle foglie (di norma più alta di quella del legno) e ignora il fosforo che torna in acqua con le foglie cadute. Un propagulo pesa da fresco 3-35 g. Anche moltiplicando per 10 la massa di una giovane pianta si resta lontani dai chilogrammi necessari.
L’esportazione di nutrienti attribuita alla mangrovia è quindi non dimostrata e, secondo i miei conti, trascurabile. Per abbassare i fosfati servono altri strumenti, dai cambi d’acqua alle macroalghe raccolte con regolarità.
Tannini e foglie cadute
Le foglie cadute cedono sostanze all’acqua in fretta. Davis e colleghi 2003 hanno visto foglie quasi senescenti di R. mangle immerse in acqua perdere circa il 18% della massa secca in 2 giorni e il 33% in 21 giorni, con perdite marcate di azoto e fosforo. Hernes e colleghi 2001 hanno misurato tannini condensati, polifenoli che colorano l’acqua di giallo bruno, oltre il 7% del peso secco privo di ceneri nelle foglie in acqua da meno di una settimana. Il dilavamento, cioè il rilascio in acqua dei composti solubili, ne porta via circa il 30%.
Non ho trovato studi sulle concentrazioni che questi composti raggiungono in vasca, né sui loro effetti su pesci e coralli. Nel marino conviene togliere le foglie appena cadono. In un acquario a tema acqua nera il colore può anche piacere, ma ogni foglia che marcisce aggiunge azoto e fosforo.
Compatibilità
Pesci d’acqua dolce e salmastra
Tra la pianta e i pesci non ho trovato conflitti documentati. La chioma sta fuori dall’acqua, quindi sotto la superficie restano solo il propagulo e le radici, che offrono riparo e una superficie per il biofilm. Il vincolo di compatibilità viene dalla salinità. Un salmastro a 10-15 PSU esclude i pesci d’acqua dolce che non tollerano il sale e apre la strada alle specie eurialine, capaci di vivere in un ampio intervallo di salinità.
Per un biotopo coerente, cioè una vasca che riproduce un ambiente naturale preciso, servono specie delle stesse coste. Monodactylus sebae vive negli estuari e nelle lagune dell’Africa occidentale tra Capo Verde e l’Angola. Secondo FishBase passa dall’acqua dolce al mare. Kryptolebias marmoratus, un piccolo rivulide delle coste di Florida, Caraibi e Brasile, vive in acque dolci e salmastre, nelle tane dei granchi e tra i tronchi di mangrovia in decomposizione (FishBase). È anche l’unico vertebrato noto che in natura si autofeconda. I pesci arciere del genere Toxotes e gli argo del genere Scatophagus, molto diffusi negli acquari salmastri, vengono invece dalle mangrovie dell’Indo-Pacifico, fuori dall’areale di R. mangle.
Piante
Nel dolce e nel salmastro la mangrovia fa ombra dall’alto e cede tannini con le foglie cadute. Le altre piante devono tollerare la salinità scelta, quindi la loro resistenza al sale va verificata specie per specie prima di alzare la salinità. Non ho trovato studi di competizione tra R. mangle e piante d’acquario. Nel refugium marino la mangrovia convive con le macroalghe, alle quali spetta il vero lavoro di esportazione dei nutrienti, perché crescono in fretta e l’acquariofilo le raccoglie.
Invertebrati d’acqua dolce
Non ho trovato studi sull’interazione tra R. mangle e gamberetti o lumache d’acquario. Il rischio documentato riguarda i granchi. In una mangrovia neotropicale i granchi Goniopsis cruentata e Ucides cordatus mangiano propaguli, con una preferenza per quelli di Avicennia schaueriana e Laguncularia racemosa rispetto a quelli di R. mangle (Ferreira e colleghi 2013). McKee elenca i predatori tra le cause principali di morte dei propaguli in Belize. Nei paludari salmastri circolano granchi da mangrovia asiatici come quelli del genere Perisesarma, per i quali non ho trovato dati sul consumo di propaguli di R. mangle. Finché la pianta non ha radici e foglie conviene tenerla lontana dai granchi.
Pesci marini
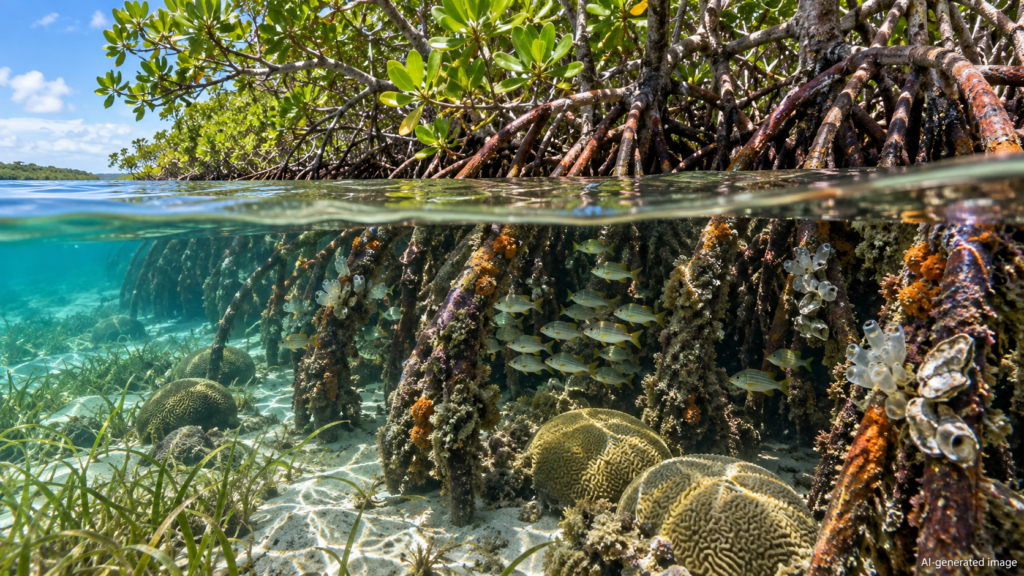
Le radici sommerse delle mangrovie caraibiche fanno da rifugio ai giovanili di molti pesci di barriera, come documentano la rassegna di Nagelkerken e colleghi 2008 e il lavoro di Mumby e colleghi. In vasca le radici di una giovane pianta offrono un riparo piccolo ma reale ai pesci di taglia minuta. Non ho trovato conflitti documentati con i pesci marini d’acquario. Gli erbivori come i pesci chirurgo non raggiungono la chioma emersa, mentre le foglie cadute in acqua vanno tolte perché rilasciano tannini e nutrienti.
Coralli
La chioma fa ombra. In natura l’ombra delle mangrovie ospita anche coralli. Nella baia di Hurricane Hole, sull’isola di St. John nelle Isole Vergini americane, Yates e colleghi 2014 hanno contato oltre 30 specie di coralli duri attaccati alle radici o cresciuti sotto la chioma. Prosperavano con oltre il 70% di attenuazione della luce incidente e a temperature più alte di quelle della barriera vicina. Nessuna colonia di Colpophyllia natans all’ombra delle mangrovie risultava sbiancata.
In vasca la pianta va collocata dove la sua ombra non tolga luce ai coralli più esigenti, come gli SPS, i coralli duri a polipi piccoli. Sotto la chioma possono stare organismi che si accontentano di luce moderata, dai coralli molli a molti LPS, i coralli duri a polipi grandi. Resta aperta la questione dei tannini, perché non ho trovato studi sull’effetto delle foglie di mangrovia in decomposizione sui coralli d’acquario.
Invertebrati marini
Sulle radici sommerse delle mangrovie vivono spugne, ascidie, bivalvi, granchi e gamberi, secondo la rassegna di Nagelkerken e colleghi. In una vasca marina matura le radici di una pianta ben radicata potrebbero ospitare spugne e altri filtratori arrivati con la roccia viva, un’ipotesi ragionevole che non ho visto documentata. Su granchi erbivori e paguri non ho trovato dati riferiti all’acquario. Vista la predazione documentata in natura, per i propaguli appena piantati vale la stessa prudenza del paludario.
Comportamento riproduttivo
I fiori di R. mangle sono ermafroditi, con organi maschili e femminili nello stesso fiore. Secondo lo USDA l’impollinazione avviene in prevalenza con il vento. I giovani alberi fioriscono entro i 6 anni, secondo alcune osservazioni già a 3-5 anni con altezze di 0,5-1 m. L’ipocotile spunta dal frutto 4-7 mesi dopo la fecondazione e si stacca dopo altri 4-6 mesi.
Due mesocosmi documentano la riproduzione in ambiente confinato. Nel mesocosmo delle Everglades le mangrovie si sono riprodotte per seme. In Biosphere 2 le 3 specie principali hanno fiorito, prodotto semi e generato plantule. Per l’acquario domestico non ho trovato fioriture documentate.
Robustezza
Nel breve periodo il propagulo è robusto. Regge settimane di conservazione, germina in oltre il 90% dei casi e tollera un ampio intervallo di salinità. Il Global Invasive Species Database indica un pH tra 5,3 e 8,5, citando un profilo di Duke del 2006. Nella prova di Richards e colleghi la mortalità si è fermata al 6,6% in 6,5 mesi, 76 piante su 1149.
Nel lungo periodo la robustezza dipende dall’ambiente. In acqua salmastra e marina 2 mesocosmi dimostrano che la specie arriva all’età adulta anche in sistemi chiusi. In acqua dolce nessun lavoro che ho trovato lo dimostra.
Lo USDA elenca tra i parassiti cocciniglie, afidi, bruchi, il coleottero perforatore e funghi. In interni, sulle foglie emerse, cocciniglie e afidi sono i candidati più probabili, una mia deduzione dai dati di vivaio. Classifico la difficoltà come bassa nel salmastro, media nel marino e alta, con esito incerto, nel dolce.
Le altre mangrovie del commercio
Avicennia germinans, la mangrovia nera, compare ogni tanto nei negozi di lingua tedesca. Espelle il sale dalle foglie con ghiandole saline e produce pneumatofori, radici che crescono verso l’alto e spuntano dal fango come matite per scambiare gas con l’aria. Suárez e Medina hanno trovato la crescita massima a salinità intermedie. McKee ha trovato la sopravvivenza delle sue plantule sensibile alla sommersione, mentre la loro densità dipendeva per il 73-80% da luce e ammonio. Nel lavoro di Ferreira e colleghi i granchi preferivano i propaguli di un’altra specie del genere, A. schaueriana, a quelli della mangrovia rossa. La IUCN classifica A. germinans come LC.
Laguncularia racemosa, la mangrovia bianca, secerne sale da ghiandole fogliari (Sobrado 2004). Sousa e colleghi la descrivono come una specie che non tollera l’ombra. Nei negozi europei che ho controllato non l’ho trovata.
Bruguiera sexangula, un’altra Rhizophoraceae, è arrivata alle Hawaii nel 1922. Krauss e Allen le attribuiscono una crescita lenta e poco variabile in condizioni favorevoli, con una forte plasticità della forma sotto stress. La mangrovia rossa cresceva invece più in fretta in un ampio intervallo di condizioni. Anche B. sexangula mancava nei negozi europei che ho controllato.
Disponibilità in commercio e analisi commerciale
Prezzi
Il 22 settembre 2026 ho controllato prezzi e disponibilità in negozi online italiani, di lingua tedesca e francesi. In Italia un propagulo costa 5-7 €, una pianta radicata di 20-35 cm 10-15 €. In Germania R. mangle va da 9 € per un propagulo, 25 € per 3, fino a 14,95 €, mentre A. germinans arriva a 19,99 €. In Francia l’unica offerta trovata costava 29,90 € ed era esaurita. La differenza di prezzo dipende soprattutto dallo stadio, propagulo nudo o pianta già radicata.
La voce più pesante è la spedizione. La consegna espressa di organismi vivi costa 24,90-39,90 €, spesso più della pianta. Conviene quindi aggiungerla a un ordine che viaggia comunque, oppure comprarla in negozio. Al momento della ricerca la disponibilità era buona in Italia e in Germania, scarsa in Francia.
Normativa e importazione
Le regole europee sono chiare. Dal 14 dicembre 2019 ogni pianta viva che entra nell’Unione da un paese terzo, propaguli compresi, deve viaggiare con il certificato fitosanitario, il documento con cui l’autorità del paese esportatore attesta l’assenza di organismi nocivi regolamentati (regolamento di esecuzione UE 2019/2072, articolo 11; Commissione europea). Dentro l’Unione le piante da impianto diverse dai semi circolano con il passaporto delle piante, previsto dall’allegato XIII dello stesso regolamento e obbligatorio anche per il privato che compra a distanza (regolamento UE 2016/2031, articolo 81). Il propagulo è una plantula già germinata, quindi rientra tra le piante da impianto. I rivenditori europei che ho controllato lo spediscono infatti con il passaporto. Un propagulo comprato su una piattaforma extraeuropea e spedito senza certificato entra nell’Unione in modo irregolare.
Il genere Rhizophora non compare in Species+, la banca dati delle specie tutelate dalla CITES e dai regolamenti UE collegati. La CITES è la convenzione di Washington sul commercio internazionale delle specie di fauna e flora minacciate. Nessuna mangrovia figura nell’elenco delle specie esotiche invasive di rilevanza unionale, aggiornato a luglio 2025. Il caso delle Hawaii basta però a ricordare che un propagulo non va mai gettato in natura.
Analisi commerciale
Il prezzo è onesto per una pianta che in buone condizioni vive anni. Le promesse lo sono meno. La frase «perfetto per acquari e paludari di acqua dolce, acqua salmastra e acqua di mare» vende come certezza una scommessa. La fama di filtro per nitrati e fosfati, alimentata dal passaparola, non regge ai conti sulla composizione delle foglie. Chi compra la mangrovia per l’estetica e per il biotopo spende bene. Chi la compra come depuratore paga a prezzo pieno una funzione che la pianta svolge in misura trascurabile. Per quel lavoro esistono macroalghe, schiumatoio e cambi d’acqua.
Pro e contro
| Pro | Contro |
|---|---|
| Propagulo economico, robusto alla spedizione e conservabile per settimane | La spedizione espressa di organismi vivi costa spesso più della pianta |
| Crescita e fotosintesi documentate da 2 a 32 PSU, dal salmastro leggero al mare | Nessuna coltura pluriennale pubblicata in acqua dolce vera |
| Radici a trampolo di grande effetto, habitat naturale di spugne, ascidie e giovanili di pesci | Crescita in vasca lenta, senza misure pubblicate |
| Pianta esclusa dalla CITES e dall’elenco UE delle specie invasive | Passaporto delle piante obbligatorio, certificato fitosanitario per l’importazione extraeuropea |
| Maturità e riproduzione documentate in mesocosmi chiusi | Diventa un albero e chiede una vasca aperta con spazio in altezza |
| Adatta a biotopi atlantici e dell’Africa occidentale | Esportazione di nutrienti trascurabile, foglie cadute ricche di tannini |
Nota da acquariofilo
Ho un debole per gli organismi che obbligano a studiare. La mangrovia rossa è tra i migliori, perché in un propagulo di 20 cm concentra fisiologia del sale, ecologia costiera e normativa fitosanitaria. Mi affascina un sigaro verde capace di raddrizzarsi da solo con movimenti quotidiani, come ha filmato Cheeseman. Con gli anni lo stesso sigaro può diventare il pezzo di foresta più credibile di un salmastro.
Se dovessi allestirne una oggi sceglierei un salmastro a 10-15 PSU con fauna delle coste atlantiche o dell’Africa occidentale, oppure un refugium marino con una lampada dedicata alla chioma. La lascerei fuori da un acquario d’acqua dolce di comunità, perché nessun lavoro che conosco dimostra che possa viverci per anni. Una pianta che resiste 3 mesi grazie alle riserve del propagulo non dimostra nulla.
Mi irrita di più la fama di filtro per nitrati e fosfati. Bastano 2 numeri, il fosforo nelle foglie e quello nel mangime, per ridimensionarla. Vorrei che chi vende la pianta facesse lo stesso conto prima di scrivere la scheda. Un’ultima raccomandazione riguarda i propaguli in più. Vanno regalati a un altro acquariofilo, mai gettati in un canale o in una laguna. Le Hawaii mostrano cosa succede quando la mangrovia rossa trova una costa adatta fuori dal suo areale.
Conclusione
La mangrovia rossa è una pianta da salmastro che tollera il mare. Negli esperimenti cresce al meglio tra 5 e 15 PSU, lavora ancora a 32-35 PSU e nei mesocosmi arriva alla maturità con salinità tra 20 e 32 parti per mille. In acqua dolce la sua sopravvivenza di lungo periodo resta priva di prove sperimentali. L’unico esperimento lungo senza sale che ho trovato si è chiuso con la morte delle piante, sia pure con un limite metodologico serio. Come strumento contro nitrati e fosfati pesa poco. Come elemento di biotopo e come lezione di ecofisiologia vale lo spazio che occupa. La mangrovia in acquario va comprata con il passaporto delle piante, coltivata in una vasca aperta e tenuta lontana dagli ambienti naturali.
Domande frequenti
La mangrovia può vivere in acqua dolce per sempre?
Nessuno studio che ho trovato lo dimostra. Werner e Stelzer hanno visto morire le piante coltivate senza sale dopo la fine di una prova di circa 200 giorni, in una soluzione non aerata che complica l’interpretazione. Alcuni autori la considerano un’alofita facoltativa, ma nessuno di quelli che ho letto presenta una coltura pluriennale in acqua dolce ossigenata. Nei primi mesi la pianta vive delle riserve del propagulo, quindi una mangrovia sana dopo 3 mesi in acqua dolce non prova nulla.
Quale salinità scegliere per una mangrovia in acqua salmastra?
La salinità più favorevole sta tra 5 e 15 PSU, cioè tra 5 e 15 grammi di sali per chilogrammo d’acqua. In questo intervallo cadono il massimo di foglie e radici a 9 PSU trovato da Pannier, il miglior guadagno di peso a 5-7 PSU di Febles-Patrón e colleghi e la crescita superiore con 11,7 g/L di cloruro di sodio di Werner e Stelzer. Per misurarla basta un rifrattometro con scala in parti per mille.
Una mangrovia abbassa nitrati e fosfati in vasca?
L’effetto è trascurabile. Con 0,40-0,93 g di fosforo per chilogrammo di foglie secche, per trattenere il fosforo che i pesci espellono consumando 1 kg di mangime servirebbero 4-15 kg di foglie secche. Il calcolo è mio e d’ordine di grandezza, ma parte da misure pubblicate. Le foglie cadute restituiscono poi all’acqua parte di azoto e fosforo.
Quanto cresce una mangrovia in acquario in un anno?
Non ho trovato misure in vasca. Convertendo i dati giornalieri di Koch, in Florida le plantule crescevano 5-15 cm l’anno sotto la chioma della foresta e 12-69 cm nelle radure. In vivaio all’aperto arrivano a 30-60 cm nel primo anno. I 5-15 cm dichiarati dai venditori coincidono con la crescita all’ombra.
Quanta acqua deve coprire la base del propagulo?
La base deve restare sotto pochi centimetri d’acqua. Lo USDA riporta il fallimento della semina diretta dove l’acqua supera i 20 cm, mentre Ellison e Farnsworth hanno visto rallentare la crescita con un livello più alto di 16 cm per 2,5 anni. In vasca conviene tenere la base a contatto con il substrato sotto 10-15 cm d’acqua al massimo, con foglie e apice sempre all’aria.
Perché compaiono cristalli bianchi sulle foglie?
La spiegazione più probabile sta negli schizzi d’acqua salata che evaporano. R. mangle esclude il sale alle radici e non ha ghiandole saline, a differenza di Avicennia e Laguncularia. Si tratta di una mia deduzione fisica, perché non ho trovato misure dirette. Nebulizzare le foglie con acqua d’osmosi scioglie i cristalli, una pratica diffusa tra gli hobbisti ma senza studi alle spalle.
Si può potare per tenerla bassa?
La cimatura dell’apice è una pratica comune tra gli hobbisti, senza studi sulla risposta della specie. L’unico dato che ho trovato viene dall’eradicazione alle Hawaii, riportato dal Global Invasive Species Database. Le piante tagliate a 10 cm dal suolo, o a filo d’acqua se giovani e sommerse, difficilmente ricacciano. Il fusto principale non va quindi mai tagliato vicino alla base.
Serve un documento per comprarla online?
Serve il passaporto delle piante, obbligatorio nell’Unione europea anche per il privato che compra a distanza. Da un paese extraeuropeo la pianta deve arrivare con il certificato fitosanitario. La CITES non riguarda il genere Rhizophora.
Il propagulo non mette foglie da 2 mesi, è morto?
Un propagulo fermo da 2 mesi può essere ancora vivo. Su 1149 propaguli seguiti da Richards e colleghi per 6,5 mesi, 166 sono rimasti dormienti. Se il propagulo è sodo e la base tocca il substrato conviene aspettare. Cheeseman ha visto rallentare tutte le fasi del raddrizzamento nei propaguli senza contatto con il fondo.
La mangrovia rilascia sostanze dannose per i coralli?
Le foglie cadute rilasciano azoto, fosforo e tannini condensati, come mostrano i lavori di Davis e di Hernes con i rispettivi colleghi. Non ho trovato studi sull’effetto di queste sostanze sui coralli d’acquario. In natura oltre 30 specie di coralli duri prosperano all’ombra delle mangrovie delle Isole Vergini americane. Per prudenza conviene togliere le foglie cadute e usare carbone attivo se l’acqua ingiallisce.
Box pratici
Parametri a colpo d’occhio
| Parametro | Valore consigliato | Base del dato |
|---|---|---|
| Salinità in salmastro | 5-15 PSU | esperimenti di Pannier, di Werner e Stelzer, di Febles-Patrón e colleghi |
| Salinità in marino | fino a 35 PSU | Krauss e Allen, mesocosmo di Biosphere 2 |
| Acqua dolce | sconsigliata per il lungo periodo | nessuna coltura pluriennale pubblicata |
| Temperatura | 24-28 °C | medie dell’areale di 21-30 °C |
| Luce alle foglie | fino a circa 600 µmol m⁻² s⁻¹ | saturazione misurata nelle plantule |
| Fotoperiodo | 10-12 ore | mia indicazione, vicina al giorno tropicale |
| Acqua sopra la base | 10-15 cm al massimo | dati dello USDA e di Ellison e Farnsworth |
| Profondità d’impianto | 2,5-4 cm | dati di vivaio dello USDA |
| Concimazione nel marino | nessuna | nutrienti già forniti dal mangime |
Messa a dimora in pratica
Il metodo più prudente parte da un propagulo sodo, senza fori, lungo almeno 15-20 cm. La base va infilata per 2,5-4 cm in sabbia grossolana o ghiaietto, su un fondo o un ripiano coperto da 5-15 cm d’acqua salmastra. Una pietra o una clip tengono fermo il propagulo finché le radici non lo ancorano. La lampada resta abbastanza alta da non scaldare apice e foglie. Chi parte da un propagulo tenuto in acqua dolce alza la salinità a gradini di circa 5 PSU, come nella prova di Richards e colleghi, che hanno raggiunto 15 parti per mille in 2 settimane.
Errori da evitare
Il primo errore nasce dall’etichetta. Una mangrovia comprata come pianta d’acqua dolce finisce in un acquario di comunità, sembra stare bene per mesi grazie alle riserve del propagulo e poi deperisce senza una causa apparente. Il secondo riguarda la profondità. Un propagulo piantato sul fondo di una vasca alta, con 30-40 cm d’acqua sopra la base, lavora in condizioni che in natura fanno fallire la semina diretta.
Altri errori da evitare sono la lampada a pochi centimetri dalle foglie, il taglio del fusto principale per contenere l’altezza, le foglie cadute lasciate a marcire in acqua, l’acquisto della pianta per abbassare i fosfati e l’abbandono in natura dei propaguli in più. L’ultimo errore è il più grave, perché i suoi danni ricadono sull’ambiente.
Segnali di stress
| Segnale | Causa possibile | Solidità del dato |
|---|---|---|
| Nessuna foglia dopo 2-3 mesi | dormienza del propagulo, base senza contatto con il substrato | documentata da Richards e colleghi e da Cheeseman |
| Foglie che ingialliscono e cadono dopo 6-12 mesi in acqua dolce | esaurimento delle riserve in assenza di sale | ipotesi coerente con Werner e Stelzer |
| Foglie secche o accartocciate vicino alla lampada | calore e luce eccessivi | analogia con l’esperimento di Febles-Patrón |
| Cristalli bianchi sulle foglie | schizzi di acqua salata evaporati | mia deduzione fisica |
| Propagulo molle e annerito | marciume | esperienza comune degli hobbisti |
| Piccoli fori nel propagulo | coleotteri perforatori | parassita documentato in natura dallo USDA e da Sousa e colleghi |
Glossario
| Termine | Significato |
|---|---|
| Aerenchima | tessuto vegetale ricco di spazi pieni d’aria che porta ossigeno agli organi sommersi |
| Alofita | pianta adattata a suoli o acque salate. È obbligata se senza sale deperisce, facoltativa se il sale lo tollera senza averne bisogno |
| Anossia | assenza di ossigeno, tipica dei sedimenti fini e stagnanti |
| Azoto Kjeldahl totale | somma di azoto organico e ammoniacale, misurata con il metodo di Kjeldahl |
| Biotopo | vasca che riproduce un ambiente naturale preciso, con piante e animali della stessa area |
| CAM-cycling | forma attenuata del metabolismo acido delle crassulacee, in cui la foglia ricicla di notte l’anidride carbonica della respirazione senza assorbirla dall’esterno |
| Certificato fitosanitario | documento dell’autorità del paese esportatore che attesta l’assenza di organismi nocivi regolamentati, obbligatorio per le piante che entrano nell’Unione europea da paesi terzi |
| CITES | convenzione di Washington sul commercio internazionale delle specie di fauna e flora minacciate |
| Dilavamento | rilascio in acqua dei composti solubili contenuti in foglie o altri tessuti |
| DOI | identificativo digitale permanente di un articolo o di un documento scientifico |
| Efficienza di riassorbimento | quota di un nutriente che la pianta recupera dalle foglie prima che cadano |
| Esclusore | pianta che blocca la maggior parte dei sali alle radici invece di espellerli dalle foglie |
| Eurialino | organismo capace di vivere in un ampio intervallo di salinità |
| Fosforo labile | frazione del fosforo del suolo subito disponibile per le radici |
| Ghiandola salina | struttura fogliare che espelle sale all’esterno, presente in Avicennia e Laguncularia |
| Indice di area fogliare | metri quadrati di foglie per ogni metro quadrato di suolo |
| Ipocotile | fusto embrionale sotto le prime foglie, che nel propagulo accumula riserve |
| Ipoderma acquifero | strato di cellule sotto l’epidermide della foglia che fa da serbatoio d’acqua e di ioni |
| IUCN | Unione internazionale per la conservazione della natura, l’ente che valuta il rischio di estinzione delle specie |
| Least Concern (LC) | categoria di rischio più bassa della Lista Rossa IUCN, per specie con popolazioni stabili e senza segnali di declino preoccupante |
| Mesocosmo | ecosistema ricostruito in scala, abbastanza grande da comportarsi come quello naturale |
| Morfotipo | forma riconoscibile dall’aspetto, che non corrisponde per forza a una specie distinta |
| Ortofosfato | fosfato inorganico disciolto, la forma misurata dai test da acquario |
| PAR | radiazione fotosinteticamente attiva, la luce tra 400 e 700 nanometri usata dalle piante |
| Passaporto delle piante | etichetta ufficiale che accompagna le piante da impianto nei movimenti dentro l’Unione europea |
| Perdita radiale di ossigeno | rilascio di ossigeno dalle radici verso il sedimento |
| Potenziale redox | misura di quanto un ambiente sia ossidato o ridotto, con valori bassi nei suoli privi di ossigeno |
| Propagulo | plantula germinata sulla pianta madre che si stacca e si disperde con l’acqua |
| PSU | unità pratica di salinità ricavata dalla conducibilità elettrica, numericamente quasi uguale ai grammi di sali per chilogrammo d’acqua |
| Punto di saturazione | intensità luminosa oltre la quale la fotosintesi della foglia smette di aumentare |
| Refugium | vasca collegata al circuito principale in cui si coltivano alghe e microfauna al riparo dai pesci |
| Rizoforo | nome formale delle radici a trampolo di Rhizophora, che scendono ad arco da fusto e rami |
| Stomi | pori della foglia attraverso cui passano anidride carbonica, ossigeno e vapore acqueo |
| Tannini condensati | polifenoli vegetali che colorano l’acqua di giallo bruno |
| Viviparità | germinazione del seme mentre il frutto è ancora attaccato alla pianta madre |
| Xilema | tessuto di vasi che porta acqua e sali minerali dalle radici alle foglie |
| Zona intertidale | fascia costiera sommersa dall’alta marea ed esposta con la bassa |
Riferimenti
Ogni voce riporta autori, anno, titolo, rivista e il collegamento al DOI o alla pagina ufficiale. Nei titoli originali ho sostituito i due punti e i trattini lunghi con un punto o una virgola. Pannier (1959), Jiménez (1994), Davis (1940), Hill (2001), Rauzon (senza data), Duke (2006) e Tam (2004) compaiono nel testo solo attraverso le fonti che li riportano, perché non li ho consultati direttamente. I prezzi e la frase commerciale citata vengono da una rilevazione del 22 settembre 2026 su negozi online italiani, di lingua tedesca e francesi, che per scelta editoriale non nomino.
Adey W.H., Finn M., Kangas P., Lange L., Luckett C., Spoon D.M. (1996). A Florida Everglades mesocosm, model veracity after four years of self-organization. Ecological Engineering 6(1-3), 171-224. DOI
Allen J.A. (1998). Mangroves as alien species. The case of Hawaii. Global Ecology and Biogeography Letters 7(1), 61-71. DOI
Allen J.A. (2002). Rhizophora mangle L. In Vozzo J.A. (a cura di), Tropical Tree Seed Manual, pp. 690-692. USDA Forest Service. PDF
Augusto da Silva C.R., dos Santos Silva M., dos Santos Lopes Ferreira L.M., Batista Leite K.R., Benedito da Silva L. (2016). Morphological and anatomical aspects of the leaves of Rhizophora mangle L. (Rhizophoraceae) under different lighting conditions. Revista de Biologia Neotropical 12(2), 74-80. DOI
Balke T., Bouma T.J., Horstman E.M., Webb E.L., Erftemeijer P.L.A., Herman P.M.J. (2011). Windows of opportunity. Thresholds to mangrove seedling establishment on tidal flats. Marine Ecology Progress Series 440, 1-9. DOI
Cerón-Souza I., Rivera-Ocasio E., Medina E., Jiménez J.A., McMillan W.O., Bermingham E. (2010). Hybridization and introgression in New World red mangroves, Rhizophora (Rhizophoraceae). American Journal of Botany 97(6), 945-957. DOI
Cheeseman J.M. (2012). How red mangrove seedlings stand up. Plant and Soil 355(1-2), 395-406. DOI
Commissione europea. Plant health rules, pagina ufficiale sulle regole fitosanitarie dell’Unione. Pagina
Davis S.E., Coronado-Molina C., Childers D.L., Day J.W. (2003). Temporally dependent C, N, and P dynamics associated with the decay of Rhizophora mangle L. leaf litter in oligotrophic mangrove wetlands of the Southern Everglades. Aquatic Botany 75(3), 199-215. DOI
Ellison A.M., Farnsworth E.J. (1997). Simulated sea level change alters anatomy, physiology, growth, and reproduction of red mangrove (Rhizophora mangle L.). Oecologia 112(4), 435-446. DOI
EPPO Reporting Service (2025). Update of the list of invasive alien species of Union concern (European Union). Numero 09-2025, articolo 2025/226, sul regolamento di esecuzione (UE) 2025/1422 del 17 luglio 2025. Pagina
Febles-Patrón J.L., Novelo López J., Batllori Sampedro E. (2007). Efecto de factores abióticos en el desarrollo de raíces primarias, crecimiento y supervivencia de propágulos en Rhizophora mangle L. Madera y Bosques 13(2), 15-27. DOI
Feller I.C., McKee K.L., Whigham D.F., O’Neill J.P. (2003). Nitrogen vs. phosphorus limitation across an ecotonal gradient in a mangrove forest. Biogeochemistry 62(2), 145-175. DOI
Ferreira A.C., Ganade G., Morais Freire F.A., Attayde J.L. (2013). Propagule predation in a Neotropical mangrove. The role of the Grapsid crab Goniopsis cruentata. Hydrobiologia 707(1), 135-146. DOI
Finn M., Kangas P., Adey W. (1999). Mangrove ecosystem development in Biosphere 2. Ecological Engineering 13(1-4), 173-178. DOI
FishBase. Kryptolebias marmoratus, scheda della specie. Pagina
FishBase. Monodactylus sebae, scheda della specie. Pagina
Global Invasive Species Database, IUCN SSC Invasive Species Specialist Group. Rhizophora mangle, scheda della specie. Pagina
Hernes P.J., Benner R., Cowie G.L., Goñi M.A., Bergamaschi B.A., Hedges J.I. (2001). Tannin diagenesis in mangrove leaves from a tropical estuary. A novel molecular approach. Geochimica et Cosmochimica Acta 65(18), 3109-3122. DOI
IUCN, Ellison A., Farnsworth E., Moore G. Rhizophora mangle. The IUCN Red List of Threatened Species. Scheda, DOI
Kanai H., Sakai A. (2021). An obligate-halophytic mangrove, Rhizophora mucronate, does not require Na+ for the uptake of nutrient ions in their roots. Aquatic Botany 169, 103328. DOI
Koch M.S. (1997). Rhizophora mangle L. seedling development into the sapling stage across resource and stress gradients in subtropical Florida. Biotropica 29(4), 427-439. DOI
Krauss K.W., Allen J.A. (2003). Influences of salinity and shade on seedling photosynthesis and growth of two mangrove species, Rhizophora mangle and Bruguiera sexangula, introduced to Hawaii. Aquatic Botany 77(4), 311-324. DOI
Krauss K.W., Ball M.C. (2013). On the halophytic nature of mangroves. Trees 27(1), 7-11. DOI
Lin G., Sternberg L. da S.L. (1995). Variation in propagule mass and its effect on carbon assimilation and seedling growth of red mangrove (Rhizophora mangle) in Florida, USA. Journal of Tropical Ecology 11(1), 109-119. DOI
Lugo A.E., Snedaker S.C. (1974). The ecology of mangroves. Annual Review of Ecology and Systematics 5, 39-64. DOI
McKee K.L. (1995). Seedling recruitment patterns in a Belizean mangrove forest. Effects of establishment ability and physico-chemical factors. Oecologia 101(4), 448-460. DOI
Medina E., Cuevas E., Lugo A.E. (2010). Nutrient relations of dwarf Rhizophora mangle L. mangroves on peat in eastern Puerto Rico. Plant Ecology 207(1), 13-24. DOI
Medina Irizarry N., Andreu M. (2023). Rhizophora mangle, red mangrove. UF/IFAS Extension, pubblicazione FOR389/FR460. Scheda
Mumby P.J., Edwards A.J., Arias-González J.E. e altri (2004). Mangroves enhance the biomass of coral reef fish communities in the Caribbean. Nature 427, 533-536. DOI
Nagelkerken I., Blaber S.J.M., Bouillon S. e altri (2008). The habitat function of mangroves for terrestrial and marine fauna. A review. Aquatic Botany 89(2), 155-185. DOI
Pi N., Tam N.F.Y., Wu Y., Wong M.H. (2009). Root anatomy and spatial pattern of radial oxygen loss of eight true mangrove species. Aquatic Botany 90(3), 222-230. DOI
Plants of the World Online, Royal Botanic Gardens, Kew. Rhizophora mangle L. Scheda
Polidoro B.A., Carpenter K.E., Collins L. e altri (2010). The loss of species. Mangrove extinction risk and geographic areas of global concern. PLoS ONE 5(4), e10095. DOI
Reef R., Feller I.C., Lovelock C.E. (2010). Nutrition of mangroves. Tree Physiology 30(9), 1148-1160. DOI
Reef R., Lovelock C.E. (2015). Regulation of water balance in mangroves. Annals of Botany 115(3), 385-395. DOI
Regolamento (UE) 2016/2031 del Parlamento europeo e del Consiglio, del 26 ottobre 2016, relativo alle misure di protezione contro gli organismi nocivi per le piante. EUR-Lex
Regolamento di esecuzione (UE) 2019/2072 della Commissione, del 28 novembre 2019, che stabilisce condizioni uniformi per l’attuazione del regolamento (UE) 2016/2031 riguardo alle misure di protezione contro gli organismi nocivi per le piante. EUR-Lex
Richards C.L., Langanke K.L., Mounger J., Fox G.A., Lewis D.B. (2021). Trait response to nitrogen and salinity in Rhizophora mangle propagules and variation by maternal family and population of origin. Frontiers in Marine Science 8, 756683. DOI
Sobrado M.A. (2004). Influence of external salinity on the osmolality of xylem sap, leaf tissue and leaf gland secretion of the mangrove Laguncularia racemosa (L.) Gaertn. Trees 18(4). DOI
Sousa W.P., Quek S.P., Mitchell B.J. (2003). Regeneration of Rhizophora mangle in a Caribbean mangrove forest. Interacting effects of canopy disturbance and a stem-boring beetle. Oecologia 137(3), 436-445. DOI
Species+. Banca dati di UNEP-WCMC e del Segretariato CITES sulle specie elencate dalla CITES e dai regolamenti UE sul commercio di fauna e flora. Banca dati
Suárez N., Medina E. (2005). Salinity effect on plant growth and leaf demography of the mangrove, Avicennia germinans L. Trees 19(6), 722-728. DOI
Sugiura S.H. (2025). Urinary phosphorus excretion in fish. Environmental and aquaculture implications. Aquatic Living Resources 38, 7. DOI
Wang W., Yan Z., You S., Zhang Y., Chen L., Lin G. (2011). Mangroves. Obligate or facultative halophytes? A review. Trees 25(6), 953-963. DOI
Werner A., Stelzer R. (1990). Physiological responses of the mangrove Rhizophora mangle grown in the absence and presence of NaCl. Plant, Cell & Environment 13(3), 243-255. DOI
Wu Y., Chung A., Tam N.F.Y., Pi N., Wong M.H. (2008). Constructed mangrove wetland as secondary treatment system for municipal wastewater. Ecological Engineering 34(2), 137-146. DOI
Yates K.K., Rogers C.S., Herlan J.J., Brooks G.R., Smiley N.A., Larson R.A. (2014). Diverse coral communities in mangrove habitats suggest a novel refuge from climate change. Biogeosciences 11(16), 4321-4337. DOI
Articolo a cura di Francesco Avezzano, giornalista pubblicista iscritto all’Ordine dei Giornalisti della Campania, divulgatore scientifico e tecnologico nel settore acquariofilo, fondatore di AquariumClick e Coralia Lab.
Condividi questo articolo:
Testo sottoposto a revisione umana e controllo editoriale prima della pubblicazione. Responsabile editoriale Francesco Avezzano, giornalista iscritto all'Ordine dei Giornalisti della Campania. Come utilizzo l'intelligenza artificiale