Acquariofilia marina
Illuminazione
acclimatazione alla luce corallo, alba e tramonto acquario, calcificazione e luce, curva fotosintesi irradianza, dli acquario reef, fotoinibizione corallo, fotoperiodo acquario marino, intensità luminosa acquario, luce artificiale notturna coralli, luce lunare acquario, ore di luce acquario marino, ore equivalenti di luce, par acquario, ppfd corallo, programma di illuminazione acquario marino, programma illuminazione led reef, quanta luce serve ai coralli, quante ore di luce ai coralli, quantimetro par, quantità giornaliera di luce, rampa led acquario, saturazione luminosa corallo, zooxantelle e luce
Francesco Avezzano
0 Commenti
Alba, picco e tramonto, come calcolare e confrontare un programma di illuminazione
Il valore di picco di una plafoniera dice pochissimo su quanta luce riceve la vasca. Due programmi con lo stesso picco possono differire del 37% nella dose giornaliera. Due programmi con la stessa dose possono sprecare l’1% oppure il 28% dei fotoni consegnati. Questo articolo dà il metodo per calcolare entrambi i numeri sul proprio programma, con le rampe contate come vanno contate. Dove la letteratura non ha studiato niente lo dico subito, perché su questo argomento i vuoti sono più grandi di quanto l’hobby ammetta.
La domanda mal posta
“Quante ore di luce servono ai coralli” è la domanda che gira da sempre nei forum. Non ha risposta perché è mal posta. Il motivo si capisce guardando come illumina realmente la gente.
Uno accende alle 08:30, sale gradualmente fino alle 12, tiene il picco fino alle 18, scende fino alle 22, poi lascia due ore di lunare. Un altro fa un’ora di alba, dieci di picco e un’ora di tramonto. Un terzo tiene otto ore piatte e stacca. Nessuno di questi tre ha “le stesse ore” dell’altro in alcun senso utile, perché nelle rampe la plafoniera sta consegnando una frazione variabile della sua potenza, non zero e non tutto.
Chiedere quante ore è come chiedere quanto è lungo un viaggio senza dire a che velocità. La domanda giusta riguarda la dose totale e il modo in cui la consegni.
Quello che la letteratura ha studiato e quello che non ha mai toccato
Prima di andare avanti, una cosa va detta senza giri di parole, perché cambia il peso di tutto il resto.
Nessuno studio controllato sui coralli ha mai testato un programma con alba e tramonto graduali.
Non è un’esagerazione retorica. L’esperimento in acquario del 2012 su Galaxea fascicularis ha usato accensioni e spegnimenti secchi, 8, 12, 16 e 24 ore piatte. Lo studio del 2023 su tre Acropora ha usato 8:16, 12:12 e 16:8, ancora piatte. Il lavoro del 2018 sulla variabilità della dose giornaliera ha alternato blocchi piatti da cinque giorni. La letteratura orticola, che sul rapporto fra ore e intensità è molto più ricca, usa anch’essa onde quadre.
La forma alba, picco, tramonto, cioè quella che usano tutti, non ha una sola validazione sperimentale pubblicata sui coralli. Cercando confronti fra rampe graduali e accensione istantanea si trovano soltanto articoli di negozi e discussioni di forum, senza uno studio dietro.
Questo significa due cose. La prima è che chiunque ti dica che la sua curva di alba è ottimale sta esprimendo una preferenza, non un risultato. La seconda è che il metodo di calcolo che segue è più utile di qualunque programma consigliato, perché ti permette di misurare cosa stai facendo invece di copiare cosa fa un altro.
Le tre grandezze, spiegate una volta sola
Il PAR, Photosynthetically Active Radiation, è la radiazione fra 400 e 700 nm, l’intervallo che la fotosintesi sa usare. È una definizione di banda, non una misura. Quando qualcuno dice “la mia plafoniera fa 300 PAR” sta usando la parola in modo improprio.
Il PPFD, Photosynthetic Photon Flux Density, è la misura vera, cioè quanti fotoni di quella banda arrivano su un metro quadro in un secondo, espressi in µmol m⁻² s⁻¹. È un valore istantaneo. Cambia con la profondità, con la posizione nella vasca e minuto per minuto se la plafoniera fa rampa.
Il DLI, Daily Light Integral, è la dose totale della giornata, in mol m⁻² d⁻¹. È l’unico numero con cui puoi confrontare due programmi diversi.
DLI = PPFD × 3.600 × ore ÷ 1.000.000
Il 3.600 converte i secondi in ore, il milione converte le micromoli in moli.
Le ore equivalenti, il pezzo che manca a tutti
La formula sopra vale per una luce accesa e spenta di colpo. Su un programma con le rampe, moltiplicare il picco per le ore totali sovrastima parecchio, perché tratta l’alba come se fosse già picco.
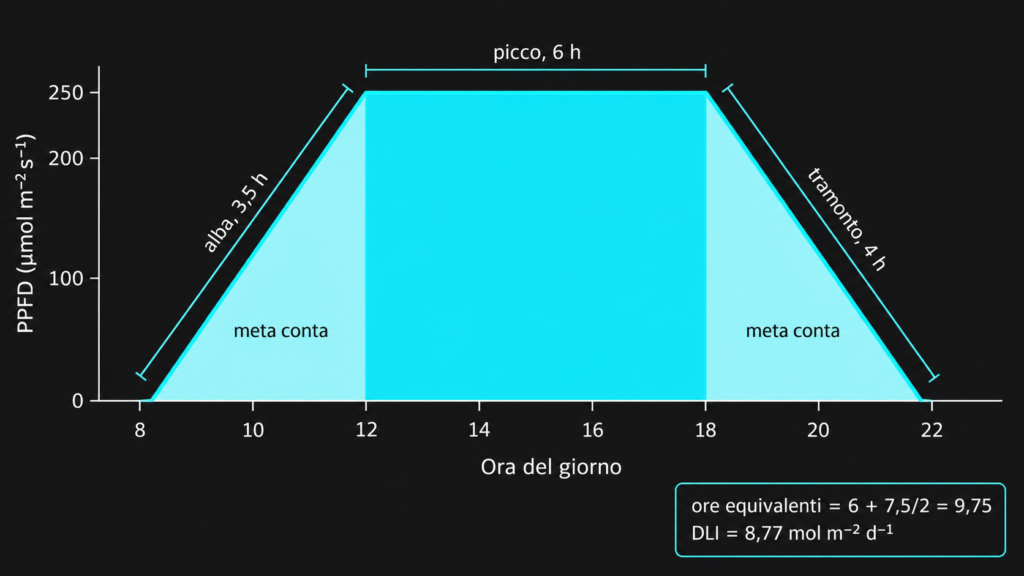
La correzione è geometrica e sta in una riga. Un profilo con alba, picco e tramonto è un trapezio. L’area di un trapezio si calcola con la base media. Tradotto in pratica
ore equivalenti = ore di picco + metà delle ore di rampa
dove le ore di rampa sono alba più tramonto. Poi usi le ore equivalenti al posto delle ore nella formula del DLI. Vale per rampe lineari, che è quello che fanno quasi tutti i controller. Se la tua rampa è una curva a esse il conto resta vicino, sbaglia di poco.
Un esempio su un programma reale. Accensione 08:30, alba fino alle 12, picco fino alle 18, tramonto fino alle 22. Sono 3,5 ore di alba, 6 di picco e 4 di tramonto, quindi 13,5 ore di luce accesa. Le ore equivalenti sono 6 più la metà di 7,5, cioè 9,75. Se il picco misurato sui coralli è 250 µmol m⁻² s⁻¹, il DLI è 250 × 3.600 × 9,75 ÷ 1.000.000, cioè 8,77 mol m⁻² d⁻¹.
Chi calcolasse 250 per 13,5 ore otterrebbe 12,15, sbagliando del 39%.
Stesso picco, dose completamente diversa
Qui arriva il primo risultato che spiazza. Prendiamo quattro modi di illuminare che esistono realmente in vasche di persone diverse, tutti con lo stesso picco misurato di 250 µmol m⁻² s⁻¹.
| Programma | Finestra accesa | Ore equivalenti | DLI a 250 µmol |
|---|---|---|---|
| alba 3,5 h, picco 6 h, tramonto 4 h | 13,5 h | 9,75 | 8,77 mol m⁻² d⁻¹ |
| alba 1 h, picco 10 h, tramonto 1 h | 12 h | 11,00 | 9,90 mol m⁻² d⁻¹ |
| alba 2 h, picco 6 h, tramonto 2 h | 10 h | 8,00 | 7,20 mol m⁻² d⁻¹ |
| nessuna rampa, 8 h piatte | 8 h | 8,00 | 7,20 mol m⁻² d⁻¹ |
Fra il primo e il secondo ci sono 1,5 ore di differenza nella finestra accesa, ma il secondo consegna il 13% di luce in più. Fra il secondo e il quarto la differenza sale al 37%, pur avendo entrambi lo stesso picco.
Adesso guarda le ultime due righe. Un programma con 10 ore di finestra e due rampe da 2 ore consegna esattamente la stessa dose di uno con 8 ore piatte. Le quattro ore di rampa valgono, insieme, due ore di picco. Non una di più.
Da qui una conseguenza pratica immediata. Quando qualcuno ti dice che tiene la vasca a 250 di picco, non ti ha detto nulla sulla quantità di luce che dà. Ti ha detto quanto è alta la sua curva, non quanto è grande la sua area.
Dove si ferma la fotosintesi
Il secondo numero che serve riguarda il punto in cui la luce smette di produrre.
Metti un corallo sotto una luce crescente e misura la produzione di ossigeno. Ottieni una curva con una forma precisa. Il tratto iniziale è lineare, ogni fotone in più si traduce in fotosintesi in più. La pendenza di quel tratto si chiama alfa. Poi la curva piega. A un certo punto si appiattisce sul plateau, chiamato Pmax. Il punto dove il prolungamento della pendenza iniziale incontra il plateau si chiama Ek, l’irradianza di saturazione.
Sopra Ek la macchina fotosintetica lavora già al massimo. I fotoni che continuano ad arrivare vengono assorbiti ma non producono zuccheri aggiuntivi.
Su Montastrea curta sono state misurate curve separate per i due strati di tessuto dello stesso polipo. Lo strato orale, quello superficiale, ha mostrato Ek fra 156 e 239 µmol m⁻² s⁻¹. Lo strato aborale, più profondo, non ha saturato affatto nell’intero intervallo testato. Lo strato orale riceve circa il 71% dell’irradianza incidente, quello aborale il 33%.
Questo dato merita un momento di attenzione, perché smonta l’idea stessa di una soglia unica.
Una colonia non ha un punto di saturazione. Ne ha uno per ogni strato di tessuto, per ogni orientamento di ramo, per ogni zona in ombra sotto i rami sovrastanti. Quando alzi l’intensità stai spingendo la superficie oltre la sua soglia per portare il tessuto profondo dentro il suo intervallo utile. È uno scambio, non un guadagno.
Per i conti che seguono uso 200 µmol m⁻² s⁻¹ come soglia di riferimento, che sta nel mezzo dell’intervallo misurato. Non è un valore universale, è un valore di lavoro per mostrare il metodo. Sulla tua vasca, con le tue specie, può stare più in basso o più in alto.
La metrica che conta, cioè quanti fotoni butti via
Adesso combiniamo le due cose.
Il danno al fotosistema II non satura. Il tasso di fotoinibizione, cioè la velocità con cui il fotosistema II si inattiva, cresce in modo direttamente proporzionale all’intensità luminosa. Questa relazione è stata misurata in foglie trattate con lincomicina, un antibiotico che blocca la sintesi proteica nel cloroplasto e quindi impedisce la riparazione, isolando il danno puro dal saldo fra danno e riparazione. Il risultato è una retta, non una curva che piega.
Quindi sotto Ek produzione e danno crescono più o meno insieme e il saldo regge. Sopra Ek la produzione è ferma sul plateau mentre il danno continua a salire. Ogni fotone consegnato sopra la saturazione è costo senza ricavo.
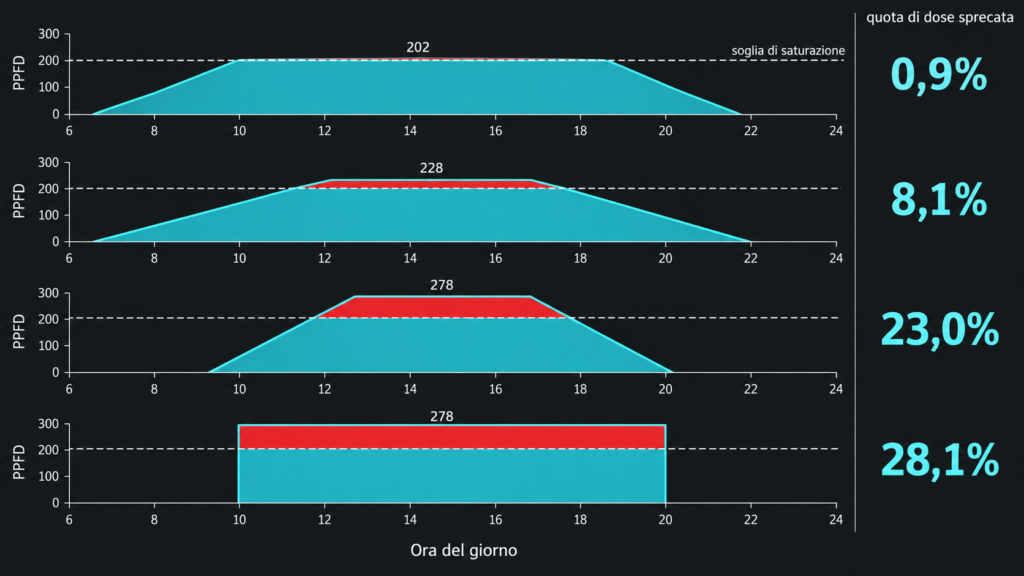
La grandezza da guardare non è quante ore stai sopra soglia. È quanta parte della dose consegni sopra soglia, perché è quella la quota che paghi senza incassare. Ho integrato i quattro profili secondo per secondo, portandoli tutti alla stessa dose di 8,0 mol m⁻² d⁻¹ e calcolando quale picco serve a ciascuno per arrivarci.
| Programma | Picco necessario per 8,0 mol | Ore sopra 200 µmol | Quota di dose sopra saturazione |
|---|---|---|---|
| alba 1 h, picco 10 h, tramonto 1 h | 202 µmol | 10,02 h | 0,9% |
| alba 3,5 h, picco 6 h, tramonto 4 h | 228 µmol | 6,92 h | 8,1% |
| alba 2 h, picco 6 h, tramonto 2 h | 278 µmol | 7,12 h | 23,0% |
| nessuna rampa, 8 h piatte | 278 µmol | 8,00 h | 28,1% |
Leggi la terza colonna prima della quarta, perché il confronto fra le due è il punto di tutto l’articolo.
Il programma con 10 ore di picco passa più tempo sopra soglia di tutti gli altri, eppure spreca lo 0,9% della dose. Quello a 8 ore piatte passa meno tempo sopra soglia e ne spreca il 28,1%. Le ore sopra saturazione non predicono nulla. Conta di quanto stai sopra, non per quanto.
La ragione è aritmetica. Chi ha una finestra lunga distribuisce la stessa dose su più tempo, quindi gli basta un picco appena sopra la soglia. Chi comprime deve alzare il picco. Siccome lo spreco cresce con la distanza dalla soglia, quel picco più alto si paga tutto.
Le rampe lunghe non sono gratis
Qui c’è il risultato che contraddice il folklore dell’hobby, quindi lo dico con i numeri davanti.
Le rampe lunghe non sono una scelta neutra che rende la giornata più dolce senza costi. Consegnano poca luce per il tempo che occupano, quindi per arrivare alla stessa dose obbligano ad alzare il picco.
Confronta le prime due righe della tabella. Il programma con 13,5 ore di finestra accesa e 7,5 ore complessive di rampa ha bisogno di un picco di 228 µmol per fare 8,0 mol. Quello con 12 ore di finestra e appena 2 ore di rampa ci arriva con 202. Meno tempo acceso, picco più basso, meno spreco. Le 7,5 ore di rampa valgono in dose quanto 3,75 ore di picco, ma occupano 7,5 ore di orologio.
Questo non significa che le rampe siano un errore. Hanno altre giustificazioni, che vediamo fra poco. Nessuna riguarda la quantità di luce. Significa che vanno messe nel conto invece di essere considerate tempo neutro.
A cosa servono le rampe, visto che non servono alla dose
Se le rampe consegnano poca luce per il tempo che occupano, perché le usiamo tutti?
La risposta onesta comincia da quello che non sappiamo. Sui coralli non esiste alcuno studio controllato che confronti una rampa graduale con un’accensione istantanea a parità di dose. Chiunque quantifichi il beneficio di una curva di alba sta inventando un numero.
Il razionale fisiologico però esiste ed è solido. I meccanismi di fotoprotezione hanno tempi di attivazione. Lo spegnimento non fotochimico di tipo energetico, la componente che smaltisce la maggior parte dell’eccesso, lavora su scala di minuti. Una salita graduale trova quei meccanismi già in funzione quando l’intensità arriva vicino al picco. Un’accensione secca a 250 µmol li trova spenti. Per qualche minuto il tessuto riceve piena potenza senza protezione attiva.
Poi c’è il pesce, che nessuno considera in questa discussione. Un’accensione istantanea in una stanza buia provoca fughe, urti contro i vetri e salti fuori vasca. Su questo non servono studi, serve avere visto una vasca accendersi di colpo.
Quindi le rampe hanno due buone ragioni, la protezione nei primi minuti e il comportamento degli animali. Nessuna delle due riguarda la quantità di luce. Sapendolo, puoi decidere quanto lunghe farle senza raccontarti che stanno facendo crescere i coralli.
La lunare, dove la letteratura esiste ed è severa
Questa è la parte che nell’hobby viene trattata come un dettaglio estetico. I dati dicono altro.
Il lavoro di riferimento è del 1985, su Pocillopora damicornis, una specie che rilascia planule con ciclo mensile. I ricercatori hanno coltivato colonie con piena luce diurna naturale variando soltanto l’irradianza notturna, con quattro trattamenti. Notte naturale, fase invertita con buio totale durante la luna piena e luce lunare durante il novilunio, luna piena costante ogni notte, buio totale ogni notte.
Il risultato è duplice e va letto con attenzione.
Nel trattamento a fase invertita il ciclo riproduttivo si è spostato seguendo la luce artificiale, uscendo dalla sincronia con il ciclo lunare naturale. Nei due trattamenti costanti, sia luna piena ogni notte sia buio ogni notte, le colonie hanno perso rapidamente la sincronizzazione mensile, pur continuando a produrre planule.
Rileggi l’ultima frase. Luce lunare fissa tutte le notti produce lo stesso effetto del buio totale, cioè la perdita del ritmo. Il segnale non è la presenza di luce notturna. È la sua variazione ciclica. Una lunare accesa due ore ogni sera allo stesso valore non sta simulando la luna, sta cancellando l’informazione che la luna trasporta.
Il capitolo successivo è più recente e più duro. Uno studio su Acropora digitifera e Acropora millepora ha esposto le colonie a luce notturna artificiale a 0,5 e 0,75 µmol m⁻² s⁻¹, livelli scelti perché rappresentativi dell’inquinamento luminoso vicino a coste urbanizzate. Nei controlli hanno deposto 12 colonie su 15 e 14 su 15. Sotto LED bianco freddo notturno hanno deposto 0 su 15 e 1 su 15. Gli autori documentano sviluppo ritardato di oociti e spermari, oltre a rilascio desincronizzato.
Da zero a una colonia su quindici. Non è un effetto sottile.
Un lavoro globale del 2023 ha poi associato la luce artificiale notturna a deposizioni anticipate di 1 fino a 3 giorni rispetto alla luna piena, con Porites a 3 giorni di anticipo. L’ipotesi degli autori è che la luce artificiale anticipi il segnale creando un periodo di illuminazione minima percepita fra tramonto e sorgere della luna.
Vanno dette due cose per onestà. La prima è che questi studi riguardano la riproduzione, non la crescita o la colorazione, quindi per chi non punta alla deposizione in vasca l’impatto pratico è minore. La seconda è che nessuno ha pubblicato misure di quanto emettono in µmol m⁻² s⁻¹ i canali lunari delle plafoniere in commercio, quindi non posso dirti se la tua lunare stia sopra o sotto quei valori. Quello che posso dirti è che 0,5 µmol è pochissimo, che la luce lunare naturale è di ordini di grandezza inferiore e che un canale lunare visibile a occhio dall’altra parte della stanza è quasi certamente molto più forte della luna vera.
Se vuoi una lunare sensata, l’indicazione che viene dai dati è di farla variare con il ciclo lunare invece di tenerla fissa, tenendola molto più bassa di quanto l’occhio suggerisca.
Il buio pieno serve, con un esperimento che lo dimostra
Nell’esperimento in vasca del 2012 il trattamento a luce continua, 24 ore su 24, consegnava la dose giornaliera più alta di tutto lo studio. Quelle colonie sono sbiancate subito e sono morte entro la quattordicesima settimana.
Il buio non è tempo perso per due ragioni indipendenti. La prima è la riparazione. Il ciclo che sostituisce la proteina D1 nel fotosistema II continua al buio senza competere con nuovo danno, quindi recupera il saldo negativo accumulato di giorno. La seconda è cronobiologica. I coralli hanno criptocromi sensibili soprattutto al blu. Analizzando l’espressione genica in Acropora millepora si è visto che alcuni geni orologio, fra cui clock, cryptochrome 2, cycle ed eyes absent, continuano a oscillare in modo robusto anche in buio costante. Sono regolati da un orologio endogeno che il ciclo luce buio sincronizza. Altri, come cryptochrome 1 e timeless, rispondono direttamente alla luce e si smorzano in sua assenza.
Un programma di illuminazione non è solo una dose distribuita nel tempo. È anche un segnale orario.
I due esperimenti che esistono sui coralli
Adesso i dati veri sulla domanda ore contro intensità, che sono pochi e in apparente disaccordo.
Il lavoro del 2012 su Galaxea fascicularis ha testato le due leve separatamente. Da un lato intensità fissa a 150 µmol m⁻² s⁻¹ con fotoperiodo su 8, 12, 16 e 24 ore. Dall’altro fotoperiodo fisso a 8 ore con intensità su 150, 225 e 300 µmol m⁻² s⁻¹. Nessuna delle due strade ha aumentato la crescita scheletrica. Il dettaglio più istruttivo è il meccanismo, perché sotto fotoperiodi lunghi la fotosintesi oraria è calata quanto bastava a lasciare il totale giornaliero invariato. Il corallo ha compensato. Gli autori hanno concluso che l’effetto della luce sulla crescita non è soltanto una questione di fotoni.
Il lavoro del 2023 su tre specie di Acropora ha testato 100 e 200 µmol m⁻² s⁻¹ incrociati con fotoperiodi di 8, 12 e 16 ore. Qui la crescita è aumentata in tutte le specie sia allungando le ore sia alzando l’intensità, senza punto di declino nell’intervallo testato.
I due risultati sembrano opposti e non lo sono. La lettura che mi convince, che presento come mia interpretazione e non come risultato pubblicato, è che stiano esplorando due tratti diversi della stessa curva. A 100 e 200 µmol quelle Acropora erano nel tratto in salita, dove ogni fotone rende. La Galaxea, specie con esigenze luminose più contenute, era già sul plateau anche nel trattamento più basso.
Questo è il motivo per cui non esiste una raccomandazione universale. Quello che conta è dove ti trovi rispetto alla tua soglia. Quella soglia dipende dalla specie, dall’acclimatazione e da quale pezzo di tessuto stai guardando.
L’orticoltura, dove il confronto a pari dose è stato fatto sul serio
Sulle piante superiori il problema è stato studiato in modo sistematico, perché in serra il costo dell’energia pesa sul bilancio.
Su lattuga e mizuna un lavoro del 2020 ha tenuto il DLI fisso a 16 mol m⁻² d⁻¹ su sei trattamenti, allungando il fotoperiodo da 10 a 20 ore con il PPFD abbassato in proporzione. A quella dose servono circa 444 µmol m⁻² s⁻¹ su 10 ore e circa 222 su 20. Il passaggio dal più corto al più lungo ha aumentato la biomassa aerea del 16,0% sulla lattuga e del 18,7% sulla mizuna, con andamento regolare sui trattamenti intermedi.
Su pak choi, nel 2025, il confronto è più netto. Portando la dose dal valore più basso al più alto allungando le ore si è ottenuto circa il 67% di peso fresco in più, mentre ottenendo la stessa dose alzando l’intensità l’aumento si è fermato al 26%. A pari dose massima, il trattamento con l’intensità più alta ha dato il peso fresco più basso del gruppo.
Il limite di questo argomento va dichiarato, altrimenti faccio esattamente ciò che rimprovero agli altri. Lattuga e corallo non sono la stessa cosa. Un corallo ha un ospite animale che respira, caccia e spende energia per calcificare, con simbionti dentro un tessuto stratificato che crea gradienti luminosi che una foglia non ha. Quello che la letteratura orticola stabilisce con solidità è un principio generale, cioè che a pari dose il modo di consegnarla cambia il risultato. Il verso di quel cambiamento nel corallo va verificato sul corallo. Quella verifica non esiste.
Perché il DLI resta il numero da calcolare
Si potrebbe concludere che la dose sia un numero inutile. Sarebbe l’errore opposto.
Uno studio del 2018 su organismi e comunità di barriera ha modellato 52 curve di risposta alla luce calcolate su scala giornaliera invece che istantanea. Tutte e 52 sono risultate quasi lineari, con coefficiente di correlazione superiore a 0,89 e significatività sotto 0,001, nonostante la saturazione ben visibile sulla scala dei minuti. La linearità si degrada soltanto quando il rapporto fra irradianza di saturazione e irradianza massima scende sotto 0,2, cosa accaduta in 13 casi su 52.
Sulla scala della giornata intera la produzione cresce quasi in proporzione alla dose, perché l’organismo ridistribuisce risorse e compensa. Il DLI predice bene quanto produrrà il sistema. Non dice nulla sul prezzo che paghi per produrlo. Quel prezzo è la quota consegnata sopra saturazione.
Servono entrambi i numeri. Uno senza l’altro inganna.
Come applicarlo alla tua vasca in quattro passaggi
Il primo passaggio è misurare il PPFD di picco nei punti dove stanno i coralli. Non a metà acqua, non sotto la superficie. Almeno cinque punti, quattro agli angoli della zona popolata e uno al centro, tutti all’ora di picco. Senza questo numero il resto è aritmetica su valori inventati.
Il secondo è calcolare le ore equivalenti del tuo programma, cioè ore di picco più metà delle ore di rampa. Da lì ricavi il DLI. Il risultato è il primo dei due numeri che ti servono.
Il terzo è stimare quanto della dose stai consegnando sopra la soglia di saturazione. Senza integrare si ottiene una buona approssimazione così. Se il picco è sotto la soglia, la quota è zero. Se il picco la supera, prendi la differenza fra picco e soglia, moltiplicala per le ore di picco e aggiungi il contributo delle rampe, che vale circa la metà di quella differenza moltiplicata per la frazione di rampa passata sopra soglia. Poi rapporta il risultato al DLI totale. Se ti sembra macchinoso, il messaggio è comunque semplice, cioè che la quota cresce con il quadrato di quanto alzi il picco, non in proporzione.
Il quarto riguarda i tempi di verifica. L’acclimatazione dei simbionti richiede almeno una quindicina di giorni, con alcune Acropora che superano i venti. Qualunque giudizio dato dopo tre giorni misura lo stress da cambiamento, non il programma.
Una regola pratica che uso, dichiarata per quello che è. Se il picco misurato sui coralli sta sotto i 150 µmol m⁻² s⁻¹ il sistema è probabilmente in difetto e conviene agire prima sulle ore. Fra 150 e 250 si lavora in una zona ragionevole per la maggior parte delle specie da acquario. Sopra i 300 su coralli non acclimatati progressivamente si paga molto per ottenere poco. Questi tre intervalli sono la mia sintesi fra i valori di saturazione misurati in letteratura e l’esperienza di vasca, non una raccomandazione pubblicata. Non esiste uno studio che li validi come tali.
Il conto metabolico che non si vede
C’è un dato di fisiologia che spiega perché le vasche tenute al limite superiore reggono benissimo per mesi, poi cedono in due giorni.
Confrontando coralli acclimatati a luce alta con coralli acclimatati a luce bassa, bloccando la sintesi proteica del cloroplasto con lincomicina, i primi mostrano un crollo molto maggiore della funzionalità del fotosistema II, mentre i secondi accusano una flessione modesta. Tradotto, un corallo sotto luce forte non sta soltanto tollerando più fotoni. Dipende da un cantiere di riparazione permanente, che gira ogni giorno per rimettere in piedi un sistema che ogni giorno viene smontato.
Un sistema del genere è stabile finché tutto il resto regge. Quando arriva un secondo stress, una punta di temperatura, un calo di alcalinità, un guasto all’impianto, la riserva è già impegnata. La risposta è molto più brusca di quanto ci si aspetti.
C’è anche un numero che rende chiaro quanto poco della luce venga usata. Sotto irradianze tipiche di barriera, intorno a 640 µmol m⁻² s⁻¹, i coralli impiegano per la fotosintesi circa il 4% della luce che assorbono. Il resto va dissipato, soprattutto attraverso lo spegnimento non fotochimico, che può smaltire oltre l’80% dell’energia di eccitazione attraverso il ciclo delle xantofille. Quella dissipazione richiede pigmenti, rimaneggiamento delle antenne, energia.
Infine il bersaglio. La fotoinattivazione del fotosistema II nei simbionti è riconosciuta come uno dei determinanti dello sbiancamento, con il sito primario del danno individuato nel complesso che sviluppa ossigeno. In natura lo sbiancamento di massa si osserva quando alta irradianza si combina con temperature superiori di 1 o 2 °C rispetto alle medie di lungo periodo.
Da qui la conseguenza pratica più utile di tutto l’articolo. Se la tua vasca ha margine termico stretto in estate, un programma con picco alto e finestra corta è la scelta peggiore, perché concentra il carico fotonico proprio nelle ore in cui è più probabile che la temperatura salga.
Calcificazione, che segue le ore più dei fotoni
I coralli depositano carbonato più in fretta in presenza di luce, fenomeno noto come calcificazione potenziata dalla luce. L’effetto è consistente, con tassi in luce nell’ordine di 2,4 volte quelli al buio, per esempio passando da circa 102,7 a 247,8 nmol cm⁻² h⁻¹ in condizioni comparabili. Il meccanismo dominante non è chimico ma energetico, cioè l’ATP prodotto dalla fotosintesi che alimenta i trasporti ionici attivi.
La conseguenza è che questo processo è legato alle ore in cui la luce è presente più che ai fotoni totali. Siccome la produzione di ATP ha un tetto legato alla saturazione, alzare il picco sopra quel tetto non accelera la calcificazione, mentre allargare la finestra estende il tempo in cui avviene.
Per completezza, la calcificazione al buio esiste e in termini di costo energetico per unità di carbonato risulta anche più efficiente, pur avvenendo a tassi assoluti inferiori. Il buio rallenta la crescita, non la azzera.
Cosa cambia nel resto del sistema
Il consumo di alcalinità segue la calcificazione, che segue le ore di luce. Allargando la finestra a parità di dose, il profilo orario del consumo di KH si allarga e si abbassa. Chi dosa con pompa peristaltica a intervalli fissi dovrebbe ridistribuire di conseguenza, altrimenti si creano finestre di sovradosaggio nelle ore buie.
L’oscillazione del pH segue lo stesso andamento. Una finestra lunga produce un’escursione più estesa nel tempo ma più dolce in pendenza, che per la stabilità è preferibile a una salita ripida concentrata in poche ore.
Sui nutrienti il discorso è meno lineare. Più ore di fotosintesi significano più consumo di azoto e fosforo da parte dei simbionti. Su vasche già povere questo può spingere i valori sotto la soglia utile.
Su alghe e cianobatteri devo essere esplicito su un punto. Nell’hobby circola l’idea che allungare il fotoperiodo favorisca gli infestanti perché saturerebbero a irradianze diverse dai coralli. Non ho trovato letteratura che confronti le soglie di saturazione di alghe filamentose e cianobatteri di vasca con quelle dei coralli, quindi quella spiegazione resta un’ipotesi non verificata. Quello che è documentato riguarda altro, cioè che il fattore determinante per un’esplosione algale è la disponibilità di nutrienti e di substrato organico. Accorciare la luce su un sistema mal gestito sposta il problema senza risolverlo.
Tutte le considerazioni di questa sezione sono estrapolazioni ragionate dai dati sulla calcificazione e sulla fotosintesi, non risultati di studi dedicati. Le do come ragionamento, non come misura.
Rischi
Il rischio del picco alto è lo sbiancamento localizzato su punte e superfici rivolte verso l’alto, che compare come scolorimento progressivo prima che il tessuto si ritiri. Spesso viene letto come carenza di nutrienti e si risponde alimentando di più, il che non tocca la causa.
Il rischio della finestra lunga è di ordine gestionale. Più ore accese significano più ore in cui un guasto al controller, una ventola ferma o un raffrescamento insufficiente lavorano contro di te.
Un terzo rischio riguarda entrambi, cioè il passaggio brusco da un programma all’altro. L’acclimatazione richiede settimane, quindi un cambio istantaneo di venti punti percentuali sull’intensità è uno stress reale.
L’ultimo rischio è di misura. I valori sulla scheda di una plafoniera sono dichiarati dal produttore in condizioni di laboratorio, tipicamente in aria, a distanza definita, su un punto singolo. La tua vasca ha acqua, vetro, pellicola superficiale, ombre. Costruire un calcolo di DLI sul dato di targa produce numeri privi di significato.
Errori comuni
Il più diffuso è confrontare due programmi guardando la percentuale impostata sul controller. La percentuale pilota il driver, non è una grandezza fotometrica, mentre la relazione con il PPFD non è lineare né uguale fra modelli diversi.
Il secondo è moltiplicare il picco per le ore di accensione ignorando le rampe. Sull’esempio visto sopra l’errore arriva al 39%.
Il terzo è confrontare vasche sul valore di picco. Senza la forma della curva quel numero non dice quanta luce riceve il sistema.
Il quarto è cambiare intensità e durata nello stesso momento, dopo di che qualunque risultato arrivi non si sa da cosa dipenda.
Il quinto è valutare troppo presto, nei giorni in cui si osserva la risposta allo stress invece della risposta al programma.
Il sesto è tenere la lunare fissa tutte le notti credendo di simulare la luna, quando i dati dicono che un segnale costante equivale a nessun segnale.
Misurare, con quali strumenti e a che prezzo
Tutto il metodo poggia sul conoscere il PPFD reale sui tuoi coralli.
Lo strumento di riferimento è il quantimetro subacqueo a spettro pieno. Il modello più diffuso nell’hobby dichiara intervallo di misura da 0 a 4.000 µmol m⁻² s⁻¹, risposta spettrale fra 389 e 692 nm con tolleranza di 5 nm, incertezza di calibrazione del 5%, deriva inferiore al 2% all’anno e sensore IP68 fino a 30 m. Il listino del produttore si aggira sui 560 dollari, mentre sul mercato europeo la forchetta osservata presso rivenditori acquariofili specializzati sta intorno ai 650 o 700 euro tasse incluse. Difficile da giustificare per una vasca sola.
Il noleggio risolve. Alcuni rivenditori italiani lo offrono con tariffe nell’ordine di 6 o 7 euro alla settimana più una ventina di euro fra spedizioni, assicurazione e sanificazione. Per caratterizzare una vasca bastano due giorni, quindi la spesa resta sotto i 40 euro. È la strada che consiglio alla maggior parte delle persone.
I sistemi di monitoraggio acquariofili che misurano anche la luce stanno intorno ai 180 euro. Non hanno la stessa accuratezza spettrale di un quantimetro da laboratorio e i valori non sono direttamente confrontabili con quelli di uno strumento calibrato. Vanno bene per seguire una tendenza sulla propria vasca, meno per confrontarsi con i numeri di altri.
Le applicazioni per smartphone che stimano il PPFD dal sensore di luminosità costano pochissimo e servono a farsi un’idea dell’ordine di grandezza. La loro accuratezza dipende dal modello di telefono, dalla calibrazione dichiarata dallo sviluppatore e dallo spettro della sorgente, senza validazione indipendente pubblicata su sorgenti LED reef. Usarle per capire se sei a 140 o a 260 è ragionevole. Usarle per discutere differenze del 10% non lo è.
Conclusione
Il punto di partenza era quale programma renda di più. La risposta utile non è un programma, è una coppia di numeri.
Il primo è la dose giornaliera, che si calcola contando le rampe per quello che valgono, cioè metà del tempo che occupano. Senza quel conto il valore di picco non dice nulla, come mostrano i due programmi che a parità di picco differiscono del 37% nella dose.
Il secondo è la quota di quella dose consegnata sopra la soglia di saturazione, che è il costo puro. Fra i quattro profili a pari dose quella quota va dallo 0,9% al 28,1% senza seguire affatto le ore passate sopra soglia. Conta di quanto stai sopra, non per quanto.
Messi insieme, i due numeri dicono una cosa sola. A parità di dose conviene la finestra più larga possibile con il picco più basso che la raggiunge, perché è la configurazione che minimizza lo spreco. Le rampe lunghe non aiutano in questo senso, anzi obbligano ad alzare il picco, quindi vanno tenute per le ragioni che le giustificano, cioè i primi minuti di fotoprotezione e la tranquillità dei pesci.
Sulla lunare la letteratura è più chiara di quanto l’hobby creda. Va nella direzione opposta all’abitudine. Una luce notturna fissa non simula niente. Se la tieni, falla variare con il ciclo lunare tenendola molto più bassa di quanto l’occhio suggerisca.
Resta il fatto più scomodo, quello con cui ho aperto. Nessuno ha mai testato in condizioni controllate un programma con alba e tramonto su coralli. Tutto quello che sopra ho dedotto dalle onde quadre degli esperimenti e dalla geometria dei trapezi è ragionamento applicato, non misura diretta. Lo dico perché chiunque ti proponga una curva ottimale con la sicurezza di chi cita uno studio, quello studio non ce l’ha.
Domande frequenti
Come calcolo la dose se la mia plafoniera fa alba e tramonto?
Conta le ore di picco pieno, aggiungi metà delle ore complessive di alba più tramonto e ottieni le ore equivalenti. Poi moltiplica PPFD di picco per 3.600, poi per le ore equivalenti, infine dividi per 1.000.000. Su un programma con 3,5 ore di alba, 6 di picco e 4 di tramonto le ore equivalenti sono 9,75, non 13,5.
Perché metà delle rampe e non tutte?
Perché una rampa lineare è un triangolo e un triangolo ha metà dell’area del rettangolo che lo contiene. Durante l’alba la plafoniera passa da zero al picco, quindi in media consegna metà del picco per tutta la durata della salita. Vale lo stesso per il tramonto.
Due vasche con lo stesso picco ricevono la stessa luce?
No. La differenza può essere enorme. A 250 µmol di picco, un programma con 1 ora di alba, 10 di picco e 1 di tramonto consegna 9,90 mol m⁻² d⁻¹, mentre uno da 8 ore piatte ne consegna 7,20. Stesso picco, 37% di differenza.
Meglio picco alto e poche ore oppure picco basso e molte ore?
A parità di dose conviene il picco più basso con la finestra più larga, perché minimizza la quota di luce consegnata sopra la soglia di saturazione. Sui quattro profili che ho calcolato quella quota va dallo 0,9% al 28,1% a parità di dose. Attenzione però al fatto che questo vale a parità di dose. Se il tuo sistema è in difetto di luce, il ragionamento cambia.
Le ore passate sopra la soglia sono un buon indicatore?
No. È il risultato più controintuitivo di tutto il discorso. Il profilo che passa più ore sopra soglia, 10 ore su 12 di finestra, è anche quello che spreca meno, cioè lo 0,9% della dose. Il profilo a 8 ore piatte passa meno tempo sopra soglia e ne spreca il 28,1%. Conta di quanto superi la soglia, non per quanto tempo.
Le rampe lunghe fanno bene ai coralli?
Non alla quantità di luce, anzi la peggiorano, perché consegnano poco per il tempo che occupano e costringono ad alzare il picco per raggiungere la stessa dose. Hanno due giustificazioni diverse. I meccanismi di fotoprotezione impiegano minuti ad attivarsi, quindi una salita graduale li trova pronti. E i pesci non vengono svegliati di colpo in una stanza buia. Nessuno studio controllato sui coralli ha mai quantificato il primo beneficio.
Esiste uno studio che confronti la mia curva di alba con un’altra?
No. Tutti gli esperimenti pubblicati sui coralli usano accensione e spegnimento secchi. Chi ti propone una curva ottimale sta esprimendo una preferenza.
Quanto deve durare l’alba?
Non c’è un numero fondato. Sapendo che i meccanismi di fotoprotezione lavorano su scala di minuti, una rampa di venti o trenta minuti copre già quella esigenza. Rampe di ore hanno un costo in dose senza un beneficio documentato in più. Detto questo, molte persone le tengono lunghe per ragioni di osservazione e non c’è nulla che dimostri che facciano danno.
La lunare serve a qualcosa?
Se tenuta fissa, probabilmente no. Potrebbe perfino fare danno. Uno studio del 1985 su Pocillopora damicornis ha mostrato che luna piena costante ogni notte e buio totale ogni notte producono lo stesso effetto, cioè la perdita della sincronizzazione mensile del rilascio di planule. Il segnale biologico sta nella variazione ciclica, non nella presenza di luce.
Quanta luce notturna basta per creare problemi?
Meno di quanto chiunque si aspetti. Uno studio su Acropora digitifera e Acropora millepora ha usato 0,5 e 0,75 µmol m⁻² s⁻¹, livelli tipici dell’inquinamento luminoso costiero. Nei controlli hanno deposto 12 e 14 colonie su 15. Sotto LED bianco freddo notturno hanno deposto 0 su 15 e 1 su 15, con gametogenesi ritardata.
La mia lunare è sopra quella soglia?
Non lo so e nessuno lo ha pubblicato. Non esistono misure indipendenti di quanto emettono i canali lunari delle plafoniere in commercio. Quello che si può dire è che 0,5 µmol è un valore bassissimo, che la luce lunare naturale è di ordini di grandezza inferiore e che un canale lunare ben visibile dall’altra parte di una stanza buia è quasi certamente molto più forte della luna vera.
Se non mi interessa la riproduzione, la lunare è un problema?
Molto meno. Gli studi disponibili riguardano gametogenesi e deposizione, non crescita o colorazione. Chi non punta alla riproduzione in vasca ha un margine più ampio. Resta il fatto che tenere una luce notturna fissa non sta simulando nulla.
Ventiquattro ore di luce fanno crescere di più?
No. Nell’unico esperimento in acquario che ha testato la luce continua su un corallo duro, quel trattamento consegnava la dose più alta dello studio e ha prodotto sbiancamento immediato con mortalità entro la quattordicesima settimana.
Quanto dura l’acclimatazione a un nuovo programma?
Almeno una quindicina di giorni per un adeguamento pigmentario sostanziale, con alcune Acropora oltre i venti. Un mese è un orizzonte prudente prima di giudicare.
Che differenza c’è fra PAR e PPFD?
Il PAR è la banda fra 400 e 700 nm, cioè una definizione. Il PPFD è la misura di quanti fotoni di quella banda arrivano su una superficie in un secondo. Nell’hobby si dice “PAR” riferendosi a un numero che è il PPFD.
Il mio controller dice 60%, a quanti µmol corrisponde?
Non è possibile saperlo senza misurare. La percentuale pilota il driver, non è una grandezza fotometrica, mentre due plafoniere sullo stesso valore possono consegnare irradianze molto diverse.
Qual è il valore PAR giusto per gli SPS?
Non esiste un valore pubblicato e validato. I numeri che circolano nell’hobby vengono da rivenditori e forum che si citano a vicenda. Le misure di irradianza di saturazione disponibili in letteratura stanno fra 156 e 239 µmol m⁻² s⁻¹ per lo strato di tessuto superficiale di una specie studiata, il che suggerisce che i valori più alti raccomandati siano abbondantemente sopra saturazione. Prendilo come indizio, non come regola.
Perché la fotosintesi satura?
Perché la catena di trasporto degli elettroni e gli enzimi di fissazione del carbonio hanno una capacità massima. Oltre quella i fotoni continuano ad arrivare e a essere assorbiti, ma l’energia in eccesso va dissipata invece che convertita. Sotto irradianze tipiche di barriera si stima che solo circa il 4% della luce assorbita finisca in fotosintesi.
Un corallo abituato a luce alta è più resistente?
È più tollerante nell’immediato, più fragile sotto stress combinato. I coralli acclimatati a luce alta dipendono molto di più dalla riparazione continua del fotosistema II, quindi quando quella capacità viene compromessa crollano più rapidamente di quelli acclimatati a luce bassa.
La calcificazione dipende dalle ore o dai fotoni?
Dalle ore, in buona parte. La calcificazione potenziata dalla luce procede a tassi nell’ordine di 2,4 volte quelli al buio, con meccanismo dominante l’ATP fornito dalla fotosintesi. Siccome la produzione di ATP ha un tetto legato alla saturazione, alzare il picco sopra quel tetto non accelera nulla, mentre allargare la finestra estende il tempo in cui il processo avviene.
Posso compensare meno luce dando più cibo?
In parte. La nutrizione eterotrofa contribuisce in modo significativo al bilancio energetico dei coralli e può sostenere colonie in condizioni di luce ridotta. Quello che il cibo non fornisce è l’ATP prodotto in loco che alimenta la calcificazione potenziata dalla luce.
Allungare il fotoperiodo mi fa venire le alghe?
È l’obiezione classica e va ridimensionata. Non ho trovato letteratura che confronti le soglie di saturazione di alghe filamentose e cianobatteri di vasca con quelle dei coralli, quindi la spiegazione che gira nell’hobby resta un’ipotesi non verificata. Il fattore determinante per un’esplosione algale è la disponibilità di nutrienti e di substrato organico. Accorciare la luce su un sistema mal gestito sposta il problema.
Qual è il modo più veloce per capire se sto esagerando?
Abbassa il picco del 20% per tre settimane lasciando la finestra dov’è, poi osserva. Se la colorazione migliora e l’estensione dei polipi aumenta, eri sopra. Se non cambia nulla, eri in zona tollerabile e il problema è altrove. Se peggiora, eri sotto. È lento e poco elegante, ma risponde sulla tua vasca invece che su quella di qualcun altro.
Box pratici
Il calcolo in trenta secondi
Ore equivalenti uguale ore di picco più metà delle ore di alba e tramonto. DLI uguale PPFD di picco per 3.600 per ore equivalenti diviso 1.000.000. Se non hai misurato il PPFD di picco, fermati qui e vai a misurarlo, perché tutto il resto dipende da quel numero.
Tabella di conversione rapida delle ore equivalenti
| Programma | Finestra accesa | Ore equivalenti |
|---|---|---|
| 0,5 h alba, 8 h picco, 0,5 h tramonto | 9 h | 8,5 |
| 1 h alba, 10 h picco, 1 h tramonto | 12 h | 11,0 |
| 2 h alba, 6 h picco, 2 h tramonto | 10 h | 8,0 |
| 3,5 h alba, 6 h picco, 4 h tramonto | 13,5 h | 9,75 |
| 4 h alba, 4 h picco, 4 h tramonto | 12 h | 8,0 |
Le ultime due righe meritano attenzione. Tredici ore e mezza di luce accesa valgono 9,75 ore equivalenti, mentre dodici ore con rampe molto lunghe ne valgono 8. La finestra più lunga non vince automaticamente.
Come cambiare programma senza fare danni
Cambia una variabile alla volta. Muovi il picco a passi non superiori al 10% e le durate a passi non superiori a trenta minuti. Lascia almeno dieci giorni fra un passo e il successivo. Annota la data di ogni modifica, perché a distanza di un mese nessuno ricorda cosa ha cambiato e quando. Giudica non prima di quattro settimane dall’ultimo passo.
Segnali che il picco è troppo alto
Scolorimento progressivo che parte dalle punte e dalle superfici rivolte verso l’alto, mentre le parti ombreggiate restano pigmentate. Polipi meno estesi nelle ore centrali che tornano normali la sera. Crescita ferma senza anomalie nei parametri chimici. Colonie che reagiscono in modo sproporzionato a una minima variazione di temperatura. Nessuno di questi segnali è specifico da solo, ma tre insieme meritano una misura del PPFD prima di qualunque altra ipotesi.
Lunare, cosa dicono i dati
Una luce notturna costante ogni notte produce lo stesso effetto del buio costante sulla sincronizzazione riproduttiva, cioè la perde. Se la usi, falla variare seguendo il ciclo lunare. Tienila molto più bassa di quanto l’occhio suggerisca, considerando che 0,5 µmol m⁻² s⁻¹ è già sufficiente a bloccare la deposizione in due specie di Acropora studiate.
Dove misurare
Nei punti dove stanno i coralli, mai a metà acqua e mai sotto la superficie. Almeno cinque punti, quattro agli angoli della zona popolata e uno al centro, sempre all’ora di picco. Segna i valori su una piantina della vasca, perché il valore singolo serve a poco mentre la mappa dice tutto sulla distribuzione della plafoniera.
Glossario
PAR Photosynthetically Active Radiation, la radiazione fra 400 e 700 nm, cioè l’intervallo spettrale che la fotosintesi è in grado di utilizzare. È una definizione di banda, non una misura.
PPFD Photosynthetic Photon Flux Density, quanti fotoni della banda PAR arrivano su un metro quadro in un secondo. Si misura in µmol m⁻² s⁻¹ ed è il numero che nell’hobby viene impropriamente chiamato “PAR”.
DLI Daily Light Integral, la dose totale di fotoni fotosinteticamente attivi ricevuta in una giornata, in mol m⁻² d⁻¹.
Ore equivalenti le ore di picco pieno più metà delle ore di rampa. È il numero da usare al posto delle ore nella formula del DLI quando il programma ha alba e tramonto graduali.
Ek l’irradianza di saturazione, il valore di PPFD oltre il quale la fotosintesi non aumenta più in modo apprezzabile. Si ricava dall’intersezione fra la pendenza iniziale della curva di risposta alla luce e il suo plateau.
Pmax il tasso massimo di fotosintesi netta raggiungibile in date condizioni, corrispondente al plateau della curva.
Alfa la pendenza del tratto iniziale della curva di risposta alla luce, cioè l’efficienza di utilizzo dei fotoni quando la luce è scarsa.
Curva P-I la curva che lega fotosintesi e irradianza. Ha forma iperbolica saturante, tratto lineare iniziale seguito da plateau.
Fotoinibizione la riduzione della capacità fotosintetica causata da eccesso di luce. Se ne distinguono due forme. Quella dinamica è reversibile nel giro di ore e ha funzione protettiva. Quella cronica riflette danno accumulato non riparato.
Fotosistema II il complesso proteico che compie la prima fase della fotosintesi ossigenica estraendo elettroni dall’acqua. È il punto più vulnerabile dell’apparato e il bersaglio primario del danno da eccesso di luce.
Proteina D1 una delle proteine centrali del fotosistema II, degradata di continuo sotto luce e sostituita da un ciclo di riparazione permanente. La velocità di quel ciclo determina quanta luce un organismo può sostenere.
Complesso che sviluppa ossigeno la porzione del fotosistema II che scinde le molecole d’acqua liberando ossigeno. È stato identificato come sito primario del fotodanno da luce visibile.
NPQ non photochemical quenching, lo spegnimento non fotochimico, l’insieme dei meccanismi con cui l’energia assorbita in eccesso viene dissipata come calore invece che convertita. Si attiva su scala di minuti.
Ciclo delle xantofille un sistema di pigmenti che si interconvertono in risposta all’eccesso di luce, componente principale dello spegnimento non fotochimico.
Zooxantelle i dinoflagellati simbionti che vivono nei tessuti dei coralli ermatipici e forniscono all’ospite gran parte del fabbisogno energetico attraverso la fotosintesi.
Strato orale e strato aborale le due bande di tessuto in cui si distribuiscono i simbionti in un polipo, rispettivamente più vicina e più lontana dalla superficie esposta. Ricevono irradianze molto diverse e si acclimatano in modo indipendente.
Calcificazione potenziata dalla luce il fenomeno per cui i coralli depositano carbonato più rapidamente in presenza di luce che al buio, sostenuto soprattutto dall’ATP prodotto dalla fotosintesi.
Criptocromi fotorecettori sensibili soprattutto al blu, presenti anche nei coralli, coinvolti nella risposta alla luce e nel funzionamento dell’orologio biologico.
ALAN Artificial Light At Night, luce artificiale notturna. Il termine con cui la letteratura indica l’inquinamento luminoso notturno e i suoi effetti biologici.
Quantimetro lo strumento che misura il PPFD. Nella versione per acquariofilia ha sensore stagno e risposta corretta per l’uso subacqueo.
Lincomicina un antibiotico che blocca la sintesi proteica nei cloroplasti. Si usa in laboratorio per impedire la riparazione del fotosistema II e misurare il danno puro, separandolo dal saldo fra danno e riparazione.
Riferimenti
Le fonti seguenti sono state consultate direttamente. Per quattro di esse, segnalate con un asterisco, l’editore limita l’accesso automatico al testo, quindi il riferimento copre l’affermazione contenuta nel titolo e nei dati bibliografici verificati, non il contenuto integrale.
- Jokiel P.L., Ito R.Y., Liu P.M. (1985). Night irradiance and synchronization of lunar release of planula larvae in the reef coral Pocillopora damicornis. Marine Biology 88, 167-174. https://doi.org/10.1007/BF00397164
- Ayalon I., Rosenberg Y., Benichou J.I.C. et al. (2021). Coral gametogenesis collapse under artificial light pollution. Current Biology 31(2), 413-419. https://doi.org/10.1016/j.cub.2020.10.039
- Davies T.W., Levy O., Tidau S., Marangoni L.F.B., Wiedenmann J., D’Angelo C., Smyth T. (2023). Global disruption of coral broadcast spawning associated with artificial light at night. Nature Communications 14, 2511. https://doi.org/10.1038/s41467-023-38070-y
- Schutter M., van der Ven R.M., Janse M., Verreth J.A.J., Wijffels R.H., Osinga R. (2012). Light intensity, photoperiod duration, daily light flux and coral growth of Galaxea fascicularis in an aquarium setting, a matter of photons? Journal of the Marine Biological Association of the United Kingdom 92(4), 703-712. https://doi.org/10.1017/S0025315411000920
- Izumi R., Tan E.S., Higa H. et al. (2023). Effects of light intensity and spectral composition on the growth and physiological adaptation of Acroporid corals. Coral Reefs 42, 385-398. https://doi.org/10.1007/s00338-023-02348-w
- Lichtenberg M., Larkum A.W.D., Kühl M. (2016). Photosynthetic acclimation of Symbiodinium in hospite depends on vertical position in the tissue of the scleractinian coral Montastrea curta. Frontiers in Microbiology 7, 230. https://doi.org/10.3389/fmicb.2016.00230
- Sawall Y., Hochberg E.J. (2018). Diel versus time-integrated (daily) photosynthesis and irradiance relationships of coral reef organisms and communities. PLOS ONE 13(12), e0208607. https://doi.org/10.1371/journal.pone.0208607
- Roth M.S. (2014). The engine of the reef, photobiology of the coral-algal symbiosis. Frontiers in Microbiology 5, 422. https://doi.org/10.3389/fmicb.2014.00422
- Tyystjärvi E., Aro E.-M. (1996). The rate constant of photoinhibition, measured in lincomycin-treated leaves, is directly proportional to light intensity. Proceedings of the National Academy of Sciences 93(5), 2213-2218. https://doi.org/10.1073/pnas.93.5.2213 *
- Zavafer A., Cheah M.H., Hillier W., Chow W.S., Takahashi S. (2015). Photodamage to the oxygen evolving complex of photosystem II by visible light. Scientific Reports 5, 16363. https://doi.org/10.1038/srep16363
- Jeans J., Campbell D.A., Hoogenboom M.O. (2013). Increased reliance upon photosystem II repair following acclimation to high-light by coral-dinoflagellate symbioses. Photosynthesis Research 118, 219-229. https://doi.org/10.1007/s11120-013-9918-y
- Warner M.E., Fitt W.K., Schmidt G.W. (1999). Damage to photosystem II in symbiotic dinoflagellates, a determinant of coral bleaching. Proceedings of the National Academy of Sciences 96(14), 8007-8012. https://doi.org/10.1073/pnas.96.14.8007 *
- Galli G., Solidoro C. (2018). ATP supply may contribute to light-enhanced calcification in corals more than abiotic mechanisms. Frontiers in Marine Science 5, 68. https://doi.org/10.3389/fmars.2018.00068
- Brady A.K., Snyder K.A., Vize P.D. (2011). Circadian cycles of gene expression in the coral, Acropora millepora. PLOS ONE 6(9), e25072. https://doi.org/10.1371/journal.pone.0025072
- Levy O. et al. (2007). Light-responsive cryptochromes from a simple multicellular animal, the coral Acropora millepora. Science 318(5849), 467-470. https://doi.org/10.1126/science.1145432 *
- DiPerna S. et al. (2018). Effects of variability in daily light integrals on the photophysiology of the corals Pachyseris speciosa and Acropora millepora. PLOS ONE 13(9), e0203882. https://doi.org/10.1371/journal.pone.0203882
- Palmer S., van Iersel M.W. (2020). Increasing growth of lettuce and mizuna under sole-source LED lighting using longer photoperiods with the same daily light integral. Agronomy 10(11), 1659. https://doi.org/10.3390/agronomy10111659
- Susilo et al. (2025). Extended photoperiod improves growth and nutritional quality of pak choi under constant daily light integral. Frontiers in Plant Science. https://doi.org/10.3389/fpls.2025.1621513
- Stallknecht E. (2025). Calculating and using daily light integral (DLI), an introductory guide. Virginia Cooperative Extension, SPES-720, Virginia Tech. https://www.pubs.ext.vt.edu/SPES/spes-720/spes-720.html
- Houlbrèque F., Ferrier-Pagès C. (2009). Heterotrophy in tropical scleractinian corals. Biological Reviews 84(1), 1-17. https://doi.org/10.1111/j.1469-185X.2008.00058.x *
- Apogee Instruments, MQ-510 full-spectrum underwater quantum meter, scheda tecnica ufficiale. https://www.apogeeinstruments.com/mq-510-full-spectrum-quantum-meter-with-underwater-sensor/
Articolo a cura di Francesco Avezzano, giornalista pubblicista iscritto all’Ordine dei Giornalisti della Campania, divulgatore scientifico e tecnologico nel settore acquariofilo, fondatore di AquariumClick e Coralia Lab.
Condividi questo articolo:
Testo sottoposto a revisione umana e controllo editoriale prima della pubblicazione. Responsabile editoriale Francesco Avezzano, giornalista iscritto all'Ordine dei Giornalisti della Campania. Come utilizzo l'intelligenza artificiale